DCQB · Universidad Autónoma de Ciudad Juárez
Sistema Redox del Glutatión & Biocatálisis Ambiental
Bienvenido a Interactoma Modular. Plataforma de difusión y divulgación científica dedicada a documentar el progreso de mi investigación doctoral en ciencias químico-biológicas (DCQB · UACJ). Este espacio integra el análisis de las ciencias ómicas, la bioinformática estructural y el modelado molecular para comprender la resiliencia redox y la biotecnología enzimática.
Caracterización estructural, cinética y de acoplamiento de 8 modelos moleculares curados: el interactoma antioxidante de Neltuma alba (GPX, GST Tau y Trx-1) y las enzimas de biorremediación de colorantes en Limnospira platensis (syn. Arthrospira platensis) (ApGHR_01 y ApGHR_02).
Carlos Montejo Dávila
Estudiante Doctoral · Profesor por Honorarios · DCQB · UACJ
Investigador en ciencias químico-biológicas con enfoque en bioinformática estructural y biología molecular. Desarrollo mi tesis doctoral sobre el sistema redox del glutatión en Neltuma alba bajo la dirección del Dr. Ángel Gabriel Díaz Sánchez y la Dra. Lilian González Segura. De manera paralela, me desempeño como profesor honorario en la UACJ.
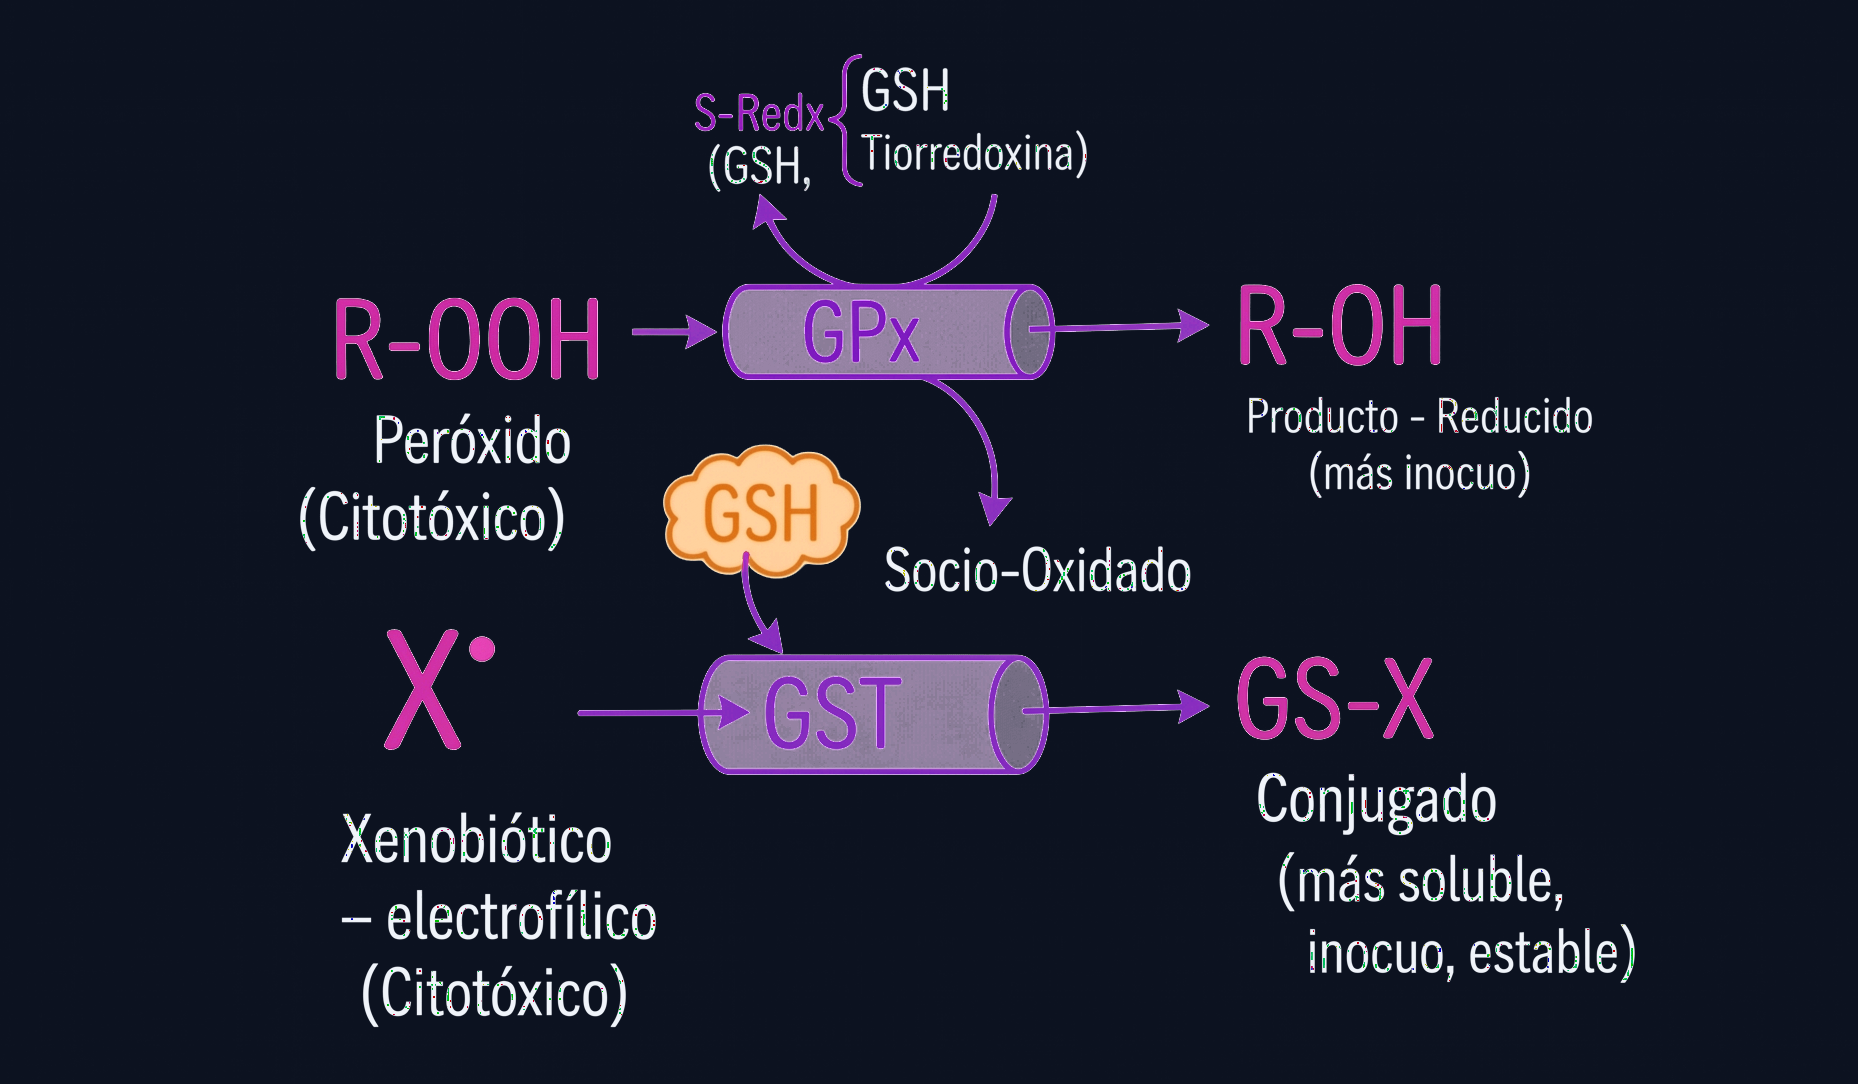
"Representación esquemática de las rutas de detoxificación y mantenimiento de la homeostasis redox. El diagrama ilustra la versatilidad de la Glutatión Peroxidasa (GPx) al reducir peróxidos citotóxicos empleando tanto glutatión (GSH) como tiorredoxina como cofactores reductores. En paralelo, se detalla la función de la Glutatión S-Transferasa (GST) en la biotransformación de xenobióticos electrofílicos, facilitando su conversión en conjugados más solubles, estables e inocuos."
Mecanismos de neutralización de especies citotóxicas · Vías dependientes de GSH y Tiorredoxina · Modelado conceptual para Neltuma alba.
Reduce directamente H₂O₂ y peróxidos lipídicos acoplada al cofactor glutatión (GSH). Modulada por interacción física directa con Tiorredoxina Trx-1 (oclusión de 1.12 Å).
Neutralización de electrófilos citotóxicos y transporte intracelular de flavonoides (quercetina). Elevada termoestabilidad y activación catalítica del tiolato por puente de H.
Reducción redox bifásica de contaminantes (Azul de Metileno a Leuco-MB) y xenobióticos sin formar aductos terminales. Confinamiento tiólico en citosol alcalino.
Tesis doctoral en Ciencias Químico-Biológicas (UACJ). Integra control redox bidireccional Trx-GPX-GST, modelado estructural 3D y biocatálisis computacional acelerada en GPU.
Modelado molecular, acoplamiento de ligandos y biofísica de 8 enzimas clave frente al estrés oxidativo árido y la biorremediación ambiental.
6 enzimas antioxidantes: GPX2, GPX4, GPX6 noSP, GPX-L1, GSTu17 y Trx-1. Adaptación molecular a sequía, salinidad y estrés abiótico árido.
2 hidroquinona reductasas: ApGHR_01 y ApGHR_02 (motivo GWGCPW). Decoloración de Azul de Metileno (2e⁻ a Leuco-MB) y detoxificación de quinonas.
Modelos Estructurales Interactivos 3D (WebGL)
Visualizaciones 3D interactivas de las proteínas clave del interactoma. Rota con arrastrar, zoom con rueda de ratón e interactúa con los residuos catalíticos y de interfaz.
Modelos tridimensionales interactivos · Clica en cualquier átomo para identificar el residuo · Desplazamiento lateral con clic derecho/arrastrar.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 18 | 7.9% |
| Arginina | Arg (R) | 9 | 3.9% |
| Asparagina | Asn (N) | 2 | 0.9% |
| Aspartato | Asp (D) | 11 | 4.8% |
| Cisteína | Cys (C) | 3 | 1.3% |
| Fenilalanina | Phe (F) | 14 | 6.1% |
| Glicina | Gly (G) | 11 | 4.8% |
| Glutamato | Glu (E) | 11 | 4.8% |
| Glutamina | Gln (Q) | 8 | 3.5% |
| Histidina | His (H) | 6 | 2.6% |
| Isoleucina | Ile (I) | 14 | 6.1% |
| Leucina | Leu (L) | 37 | 16.2% |
| Lisina | Lys (K) | 10 | 4.4% |
| Metionina | Met (M) | 4 | 1.7% |
| Prolina | Pro (P) | 17 | 7.4% |
| Serina | Ser (S) | 10 | 4.4% |
| Tirosina | Tyr (Y) | 6 | 2.6% |
| Triptófano | Trp (W) | 3 | 1.3% |
| Treonina | Thr (T) | 9 | 3.9% |
| Valina | Val (V) | 16 | 7.0% |
Arquitectura: GST_N_Tau (aa 1-85) → Linker (aa 86-95) → GST_C_Tau (aa 96-219) → His₆-tag C-term (aa 223-228).
Composición Atómica: C₁₁₆₂ H₁₇₇₂ N₂₉₂ O₃₃₀ S₇
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
NaGSTu17 pertenece a la clase vegetal Tau (U) de Glutatión S-Transferasas homodiméricas. A diferencia de las clases Alfa/Mu/Pi de mamíferos (que usan Tyr) o las Theta/Zeta (que usan Ser o Cys), las GSTs vegetales Tau utilizan Ser16 en el dominio N-terminal tipo tiorredoxina para estabilizar y desprotonar al glutatión:
Lys43, Lys56, Glu69, Ser70) que une GSH con afinidad micromolar (Km ~ 0.18 mM) orientando el grupo tiol hacia Ser16.Phe110, Val12, Leu113 y Phe18. Aloja xenobióticos electrofílicos como CDNB y productos de peroxidación lipídica (4-HNE).
El tripéptido γ-Glu-Cys-Gly (GSH) entra al Sitio G. Sus carboxilatos terminales se anclan mediante puentes salinos con Lys43 y Lys56, mientras que el esqueleto peptídico queda orientado por Glu69 y Ser70.
La Ser16 acepta y estabiliza el protón del tiol mediante enlace de hidrógeno, deslocalizando la densidad de carga negativa en el azufre y reduciendo el pKa de ~8.7–9.0 en solución a ~6.2–6.5 en el microambiente del Sitio G. Esto permite que el glutatión se encuentre 100% ionizado como nucleófilo fuerte GS⁻ a pH fisiológico neutro/levemente ácido.
El sustrato xenobiótico (p. ej., 1-cloro-2,4-dinitrobenceno / CDNB) atraca en la cavidad hidrofóbica adyacente (Sitio H). El anillo bencénico de Phe110 forma un emparedado π-π directo con el anillo de CDNB, posicionando el carbono electrofílico (C-1) directamente frente a GS⁻.
El tiolato GS⁻ ejecuta una adición-eliminación aromática (SNAr) sobre el C-1 del CDNB, expulsando al anión cloruro (Cl⁻) como grupo saliente y formando el conjugado soluble GS-DNB (S-(2,4-dinitrofenil)glutatión).
| Módulo Molecular | Residuos Clave | Mecanismo Físico-Químico | Rol en Detoxificación |
|---|---|---|---|
| Residuo Catalítico | Ser16 (Dominio N) | Puente de H con el tiol de GSH; decrementa pKa a ~6.5 | Activación nucleofílica de GS⁻ |
| Sitio G (Unión GSH) | Phe18, Lys43, Lys56, Ile57, Glu69, Ser70 | Red electrostática y enlace H con carboxilatos y aminas de GSH | Fijación y orientación precisa del donador |
| Sitio H (Bolsillo Xenobiótico) | Phe110, Val12, Leu113, Trp164, Phe208 | Bolsillo hidrofóbico con apilamiento π-π sobre anillos aromáticos | Fijación de herbicidas, CDNB y lípidos oxidados |
| Interfaz de Dimerización | Arg88, Glu92, Phe134, Tyr138 | Interacciones hidrofóbicas e iónicas intermonoméricas | Estabilidad del homodímero; integridad del sitio G |
ORF de NaGSTu17 (687 pb DNA · 229 aminoácidos)
Proteína traducida (229 aa)
Concentración de IPTG: 0.1–0.3 mM. Se eligió una inducción baja para favorecer el correcto plegamiento y solubilidad. Concentraciones superiores a 0.5 mM provocan cuerpos de inclusión reversibles debido a la sobreexpresión del vector pET-16b con el promotor T7.
Temperatura de Inducción: 18–20°C durante 16–18 h. La baja temperatura reduce la tasa de traducción ribosomal, permitiendo que chaperonas endógenas contribuyan al plegamiento nativo y la dimerización correcta de GST U17.
Medio de Cultivo: LB (Luria-Bertani) como medio basal suplementado con ampicilina 100 µg/mL. Aunque TB duplica la biomasa, se eligió LB para mantener condiciones controladas. El medio se complementó con glucosa 0.2% para suprimir expresión basal del operón lac (glucosa → ↓ cAMP → ↓ CAP → ↓ transcripción T7 antes de la inducción).
Resistencia: Ampicilina (gen bla en el vector pET-16b, que codifica β-lactamasa).
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Explora el Sitio G: Selecciona el badge Sitio G (GSH) para resaltar los 7 residuos clave (Ser16 catalítica, Phe18, Lys43, Lys56, Ile57, Glu69, Ser70). La Ser16 es el residuo catalítico primario que desprotona el tiol de GSH.
🟡 Bolsa H (Xenobióticos): El badge Sitio H (CDNB) resalta 12 residuos del bolsillo hidrofóbico, centrado en Phe110 (apilamiento π-π con CDNB).
🟢 Cisteínas Redox: Cys68 (soluble, sensible a oxidación), Cys167 (interfaz C-term), Cys200 (C-term).
🔷 Homodímero: Usa los badges Interfaz Dimer N-term y C-term para visualizar la topología de dimerización. La estructura cuaternaria es esencial para su actividad — los sitios activos de cada monómero se orientan en direcciones opuestas.
Modelado en tiempo real de la velocidad inicial catalítica (v₀) en función de la concentración de sustrato ([S]). Permite contrastar la saturación hiperbólica directa con la linealización por dobles recíprocos de Lineweaver-Burk para la determinación gráfica rigurosa de Vmax y Km.
Para el ensayo con NaGSTU17, la velocidad v₀ se calcula a partir de la pendiente lineal ΔA₃₄₀/min generada por el aducto GS-DNB (ε₃₄₀ = 9,600 M⁻¹·cm⁻¹, paso óptico b ≈ 0.588 cm en 200 µL). Para ApGHR_01, la reducción de Azul de Metileno se monitorea a λ = 664 nm (ε₆₆₄ = 74,000 M⁻¹·cm⁻¹). Los parámetros Km y Vmax simulados arriba reproducen los rangos reportados en la literatura y validan el muelle catalítico observado en el visor 3D.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 15 | 7.9% |
| Arginina | Arg (R) | 6 | 3.2% |
| Asparagina | Asn (N) | 11 | 5.8% |
| Aspartato | Asp (D) | 11 | 5.8% |
| Cisteína | Cys (C) | 3 | 1.6% |
| Fenilalanina | Phe (F) | 10 | 5.3% |
| Glicina | Gly (G) | 16 | 8.5% |
| Glutamato | Glu (E) | 9 | 4.8% |
| Glutamina | Gln (Q) | 5 | 2.6% |
| Histidina | His (H) | 0 | 0.0% |
| Isoleucina | Ile (I) | 6 | 3.2% |
| Leucina | Leu (L) | 20 | 10.6% |
| Lisina | Lys (K) | 21 | 11.1% |
| Metionina | Met (M) | 1 | 0.5% |
| Prolina | Pro (P) | 6 | 3.2% |
| Serina | Ser (S) | 10 | 5.3% |
| Tirosina | Tyr (Y) | 6 | 3.2% |
| Triptófano | Trp (W) | 3 | 1.6% |
| Treonina | Thr (T) | 12 | 6.3% |
| Valina | Val (V) | 18 | 9.5% |
Arquitectura: Dominio tiorredoxina-like con tríada catalítica Cys42-Gln77-Trp131-Asn132. Monómero globular con 3 cisteínas: Cys42 (catalítica), Cys107 (interna estructural), Cys148 (superficial reguladora).
Composición Atómica: C₉₂₉ H₁₄₃₅ N₂₅₀ O₂₇₈ S₄
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
A diferencia de las GPX4 de mamíferos que incorporan Selenocisteína (Sec) y dependen directamente de GSH para su regeneración, NaGPX4 de Neltuma alba es una Glutatión Peroxidasa vegetal no-seleno que emplea una Cisteína catalítica (Cys42) y opera con preferencia cinética hacia la Tiorredoxina (TrxH) como su donador reductor fisiológico primario:
Gln77, Trp131 y Asn132, ejecutando el ataque directo sobre el enlace peróxido O-O.Lys41, Lys43, Lys127, Lys129) que acopla con el ditiol del motivo WCCPC de TrxH para la regeneración reductora inmediata.
El hidroperóxido tóxico (fosfolípido peroxidado ROOH o H₂O₂) atraca en el bolsillo catalítico. El tiolato de Cys42 realiza un ataque nucleofílico sobre el oxígeno electrofílico del enlace peróxido (O-O), protonado de forma coordinada por Gln77 y Trp131.
El intermediario sulfénico Cys42-SOH es altamente inestable. En presencia de GSH libre, se forma transitoriamente un enlace mixto Cys42-S-SG (glutationilación protectora) o interactúa con cisteínas auxiliares, protegiendo al centro catalítico contra la sobreoxidación irreversible a ácido sulfínico (-SO₂H) o sulfónico (-SO₃H).
La Tiorredoxina H se une con alta afinidad a la interfaz electrostática de NaGPX4. La Cys23 desprotonada de TrxH ataca el enlace azufre oxidado de Cys42, formando un complejo transitorio de disulfuro mixto intermolecular GPX4-S-S-TrxH.
La segunda cisteína de TrxH (Cys26) ataca internamente a Cys23, liberando a NaGPX4 y generando TrxH oxidada (disulfuro intramolecular Cys23-S-S-Cys26). La NADPH-Tiorredoxina Reductasa (NTR) reduce nuevamente a TrxH consumiendo NADPH.
| Elemento Molecular | Residuos | Propiedad Bioquímica | Función |
|---|---|---|---|
| Cisteína Peroxidásica (Cp) | Cys42 | Nucleófilo redox; pKa desplazado a ~5.8 | Ataque sobre peróxidos; oxidación a Cys-SOH |
| Tétrada Polar Estabilizadora | Gln77, Trp131, Asn132 | Red de puentes de H y estabilización dipolo de hélice α | Fijación del grupo -OOH del peróxido y activación de Cp |
| Bolsillo Fosfolipídico | Phe46, Leu47, Tyr130 | Hendidura hidrofóbica expuesta | Reconocimiento de cadenas acilo lipoperoxidadas |
| Parche Interfaz TrxH | Lys41, Lys43, Lys127, Lys129 | Superficie catiónica básica complementaria a TrxH | Acoplamiento y transferencia de electrones desde TrxH |
Forma madura de NaGPX4 (189 aminoácidos, sin péptido señal)
Docking Molecular con GSH: Acoplamiento del glutatión reducido (GSH) mediante SwissDock. Energía de unión ΔG = -6.43 kcal/mol. El grupo tiol de GSH se posiciona a 4.2 Å de la Cys42 catalítica, validando el mecanismo de reducción en dos pasos (oxidación de Cys42 a ácido sulfénico, seguida de reducción por GSH).
Especificidad por Hidroperóxidos Lipídicos: El Trp131 y Asn132 forman un bolsillo catalítico que reconoce selectivamente grupos hidroperóxido (-OOH) sobre fosfolípidos. La preferencia por fosfolípidos hidroperoxidados sobre H₂O₂ libre es consistente con su rol de protección de membranas.
Interacción con TrxH (HDOCK): Docking proteína-proteína con TrxH de N. alba. Score = -261.13, distancia mínima Cys42(GPX4) → Cys23(TrxH) = 0.95 Å, indicando una interfaz de transferencia electrónica altamente eficiente para la regeneración reductora de GPX4.
Buffer Idóneo: Fosfato sódico 50 mM, pH 7.4, suplementado con DTT 1 mM para mantener el entorno reductor y prevenir la oxidación inespecífica de las cisteínas expuestas.
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Sitio Activo (Cys42): Selecciona el badge Sitio Activo para resaltar Cys42, Gln77, Trp131 y Asn132. La Cys42 es la cisteína peroxidásica (Cp) que ataca directamente el enlace O-O de los hidroperóxidos.
🟢 3 Cisteínas: Cys42 (catalítica, enterrada), Cys107 (interna, contribuye al empaquetamiento globular), Cys148 (expuesta al solvente, susceptible a glutationilación).
🔷 Interfaz TrxH: Usa el badge Interfaz Unión TrxH para visualizar los 8 residuos (Lys41, Lys43, Asp75, Glu79, Lys127, Lys129, Asp135, Lys139) que median el acoplamiento con la tiorredoxina. La complementariedad electrostática (parche básico de GPX4 + superficie ácida de TrxH) guía la formación del complejo.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 8 | 4.8% |
| Arginina | Arg (R) | 3 | 1.8% |
| Asparagina | Asn (N) | 11 | 6.6% |
| Aspartato | Asp (D) | 7 | 4.2% |
| Cisteína | Cys (C) | 3 | 1.8% |
| Fenilalanina | Phe (F) | 11 | 6.6% |
| Glicina | Gly (G) | 13 | 7.8% |
| Glutamato | Glu (E) | 14 | 8.4% |
| Glutamina | Gln (Q) | 11 | 6.6% |
| Histidina | His (H) | 0 | 0.0% |
| Isoleucina | Ile (I) | 9 | 5.4% |
| Leucina | Leu (L) | 14 | 8.4% |
| Lisina | Lys (K) | 18 | 10.8% |
| Metionina | Met (M) | 1 | 0.6% |
| Prolina | Pro (P) | 6 | 3.6% |
| Serina | Ser (S) | 9 | 5.4% |
| Tirosina | Tyr (Y) | 7 | 4.2% |
| Treonina | Thr (T) | 7 | 4.2% |
| Triptófano | Trp (W) | 1 | 0.6% |
| Valina | Val (V) | 14 | 8.4% |
Arquitectura: Dominio tiorredoxina-like con tríada catalítica Cys41-Gln76-Trp130-Asn131. Monómero globular con 3 cisteínas: Cys41 (catalítica), Cys70 (interna estructural), Cys89 (superficial expuesta).
Composición Atómica: C₈₅₃ H₁₃₃₃ N₂₁₇ O₂₅₆ S₄
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
Forma madura citosólica de NaGPX2 (167 aminoácidos)
Docking Molecular con GSH: Acoplamiento del glutatión reducido (GSH) mediante SwissDock. Energía de unión ΔG = -6.56 kcal/mol. El grupo tiol de GSH se posiciona a 2.41 Å de la Cys41 catalítica, validando el mecanismo de reducción en dos pasos.
Especificidad por H₂O₂: El bolsillo catalítico expuesto y la accesibilidad de Cys41 sugieren una afinidad preferente por peróxido de hidrógeno (H₂O₂), consistente con su localización citosólica para mantener la homeostasis redox general.
Interacción con TrxH (HDOCK): Docking proteína-proteína con TrxH de N. alba. Score = -226.04. La distancia mínima intermolecular Cys41(GPX2) → Cys23(TrxH) es de 2.41 Å, indicando una interfaz de regeneración eficiente y complementaria.
Buffer Idóneo: Fosfato sódico 50 mM, pH 7.2, suplementado con EDTA 1 mM para evitar la oxidación inducida por metales de transición.
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Sitio Activo (Cys41): Selecciona el badge Sitio Activo para resaltar Cys41, Gln76, Trp130 y Asn131. La Cys41 es la cisteína peroxidásica (Cp) que ataca el enlace O-O de los sustratos.
🟢 3 Cisteínas: Cys41 (catalítica), Cys70 (interna globular), Cys89 (soluble de superficie).
🔷 Interfaz TrxH: Usa el badge Interfaz Unión TrxH para visualizar los 8 residuos (Lys40, Lys42, Asp74, Glu78, Lys126, Lys128, Asp134, Lys138) que median el acoplamiento con la tiorredoxina.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 10 | 6.2% |
| Arginina | Arg (R) | 2 | 1.2% |
| Asparagina | Asn (N) | 10 | 6.2% |
| Aspartato | Asp (D) | 11 | 6.8% |
| Cisteína | Cys (C) | 3 | 1.9% |
| Fenilalanina | Phe (F) | 11 | 6.8% |
| Glicina | Gly (G) | 14 | 8.7% |
| Glutamato | Glu (E) | 9 | 5.6% |
| Glutamina | Gln (Q) | 6 | 3.7% |
| Histidina | His (H) | 1 | 0.6% |
| Isoleucina | Ile (I) | 7 | 4.3% |
| Leucina | Leu (L) | 14 | 8.7% |
| Lisina | Lys (K) | 18 | 11.2% |
| Metionina | Met (M) | 0 | 0.0% |
| Prolina | Pro (P) | 6 | 3.7% |
| Serina | Ser (S) | 12 | 7.5% |
| Tirosina | Tyr (Y) | 7 | 4.3% |
| Treonina | Thr (T) | 7 | 4.3% |
| Triptófano | Trp (W) | 1 | 0.6% |
| Valina | Val (V) | 12 | 7.5% |
Arquitectura: Modelo maduro sin péptido de tránsito (noSP). Se retiraron los residuos 1-77 y se conserva el núcleo plegado 78-238 con numeración nativa. La tétrada funcional se mantiene como Cys113-Gln148-Trp202-Asn203.
Cisteínas conservadas: 3 cisteínas en el núcleo maduro: Cys113 (catalítica), Cys142 (reguladora interna) y Cys161 (superficial). Cys11/Cys21 pertenecían a la extensión N-terminal recortada.
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
Secuencia madura de NaGPX6 sin péptido de tránsito (161 aminoácidos; numeración estructural conservada 78-238)
Docking Molecular con GSH: Acoplamiento con GSH mediante SwissDock. Energía de unión calculada en ΔG = -6.13 kcal/mol. El azufre nucleofílico de GSH se posiciona a 3.41 Å de la Cys113 catalítica, en alineación correcta para la regeneración reductora.
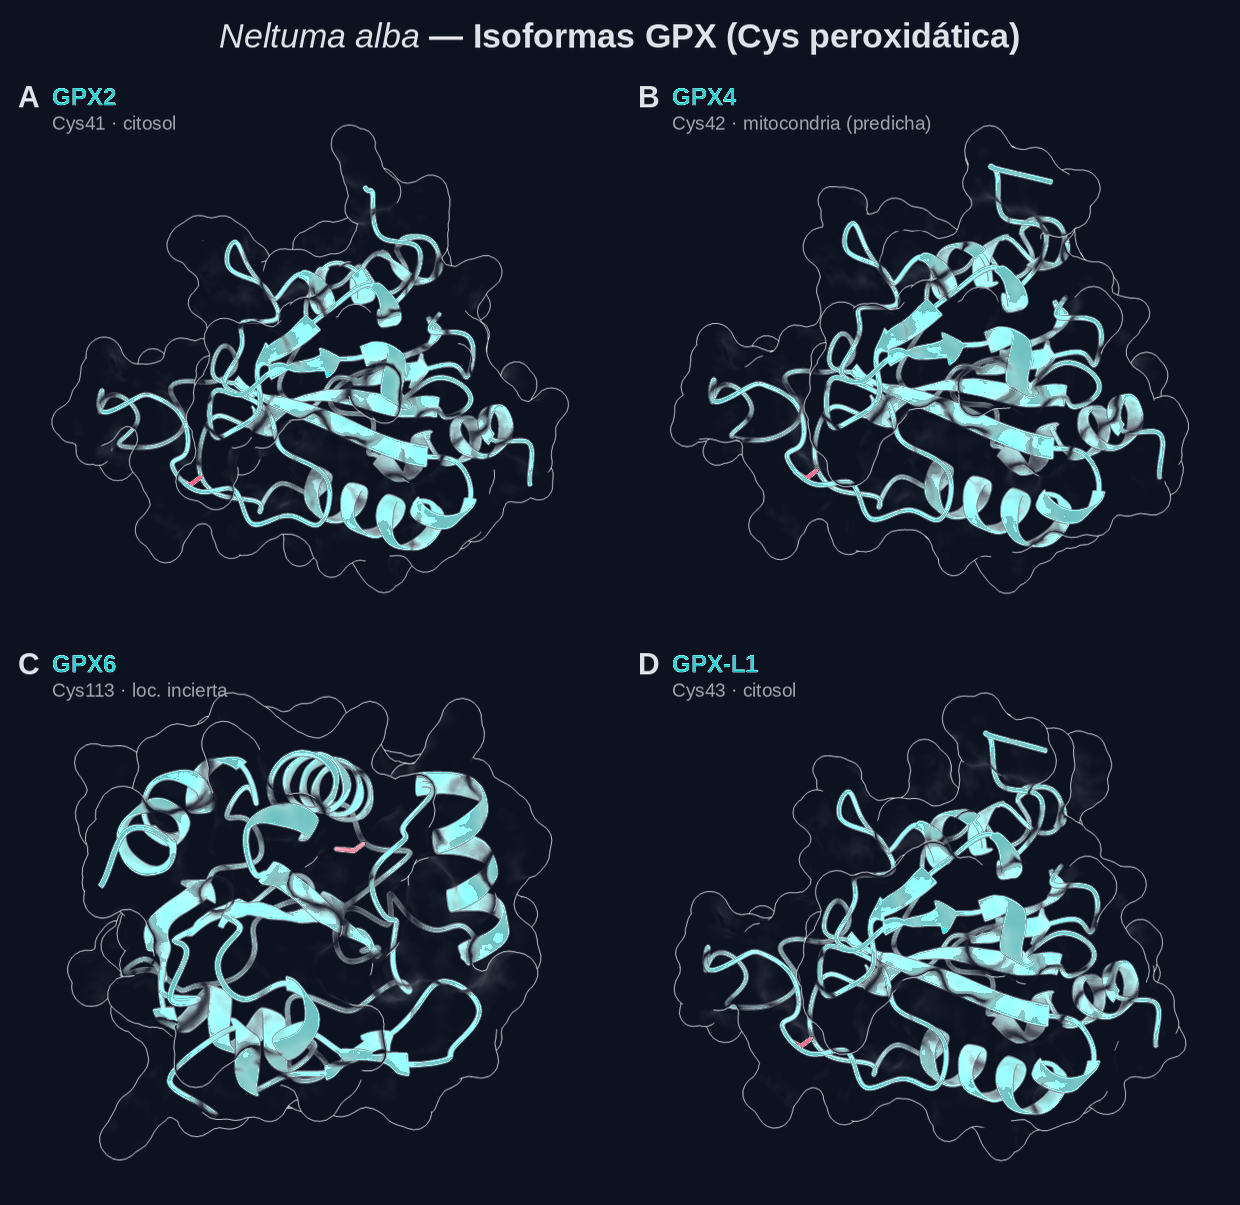
Reframe del modelo: El modelo estructural mostrado corresponde al núcleo maduro noSP. La localización queda marcada como incierta: existe predicción cloroplástica por secuencia completa, pero el ortólogo funcional comparado sugiere cautela en la asignación subcelular.
Docking proteína-proteína con TrxH: Score de -226.04 mediante HDOCK. Muestra una interfaz electrostática complementaria indispensable para la reducción y reactivación del sitio activo oxidado.
Buffer Recomendado: Tris-HCl 50 mM, pH 7.8, imitando el pH alcalino del estroma cloroplástico activo en presencia de luz.
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Sitio Activo (Cys113): Selecciona el badge Sitio Activo para resaltar Cys113, Gln148, Trp202 y Asn203.
🟢 3 Cisteínas maduras: Cys113 (catalítica), Cys142 (interna reguladora) y Cys161 (superficial). Cys11/Cys21 no están en el modelo noSP porque pertenecían al péptido de tránsito recortado.
🔷 Interfaz TrxH: Usa el badge Interfaz Unión TrxH para visualizar los 8 residuos (Lys112, Lys114, Asp146, Glu150, Lys198, Lys200, Asp206, Lys210) que interactúan con TrxH.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 7 | 4.1% |
| Arginina | Arg (R) | 3 | 1.8% |
| Asparagina | Asn (N) | 11 | 6.5% |
| Aspartato | Asp (D) | 14 | 8.3% |
| Cisteína | Cys (C) | 4 | 2.4% |
| Fenilalanina | Phe (F) | 10 | 5.9% |
| Glicina | Gly (G) | 13 | 7.7% |
| Glutamato | Glu (E) | 10 | 5.9% |
| Glutamina | Gln (Q) | 5 | 3.0% |
| Histidina | His (H) | 0 | 0.0% |
| Isoleucina | Ile (I) | 11 | 6.5% |
| Leucina | Leu (L) | 13 | 7.7% |
| Lisina | Lys (K) | 16 | 9.5% |
| Metionina | Met (M) | 1 | 0.6% |
| Prolina | Pro (P) | 7 | 4.1% |
| Serina | Ser (S) | 8 | 4.7% |
| Tirosina | Tyr (Y) | 8 | 4.7% |
| Treonina | Thr (T) | 11 | 6.5% |
| Triptófano | Trp (W) | 2 | 1.2% |
| Valina | Val (V) | 15 | 8.9% |
Arquitectura: Dominio tiorredoxina-like con tétrada catalítica Cys43-Gln78-Trp132-Asn133. Monómero globular con 4 cisteínas: Cys43 (catalítica), Cys72 (interna estructural), Cys91 (de superficie), Cys121 (secundaria expuesta).
Composición Atómica: C₈₅₉ H₁₃₂₈ N₂₁₂ O₂₆₂ S₅
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
Forma madura de NaGPX-L1 (169 aminoácidos)
Docking Molecular con GSH: Energía de unión calculada de ΔG = -6.34 kcal/mol, con una distancia intermolecular tiol-azufre catalítico de 2.44 Å a la Cys43, validando la complementariedad estructural.
Preferencia por Hidroperóxidos Orgánicos: Posee cavidades hidrofóbicas expuestas que se acoplan con alta afinidad a hidroperóxidos orgánicos de cadena corta como el hidroperóxido de terc-butilo (tBHP), con energía libre de ΔG = -5.26 kcal/mol.
Docking con TrxH (HDOCK): Score de -233.51. Exhibe compatibilidad electrostática e interfaces hidrofóbicas conservadas para transferencia de equivalentes reductores por parte de la tiorredoxina soluble.
Buffer Ideal: PBS 50 mM pH 7.4 + EDTA 1 mM + DTT 1 mM.
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Sitio Activo (Cys43): Selecciona el badge Sitio Activo para resaltar Cys43, Gln78, Trp132 y Asn133.
🟢 4 Cisteínas: Cys43 (catalítica), Cys72 (interna), Cys91 (soluble periférica), Cys121 (secundaria de superficie).
🔷 Interfaz TrxH: Usa el badge Interfaz Unión TrxH para visualizar los 8 residuos (Lys42, Lys44, Asp76, Glu80, Lys128, Lys130, Asp136, Lys140) que intervienen en la unión.
| Aminoácido | Código | Nº | % |
|---|---|---|---|
| Alanina | Ala (A) | 15 | 14.2% |
| Arginina | Arg (R) | 2 | 1.9% |
| Asparagina | Asn (N) | 4 | 3.8% |
| Aspartato | Asp (D) | 7 | 6.6% |
| Cisteína | Cys (C) | 6 | 5.7% |
| Fenilalanina | Phe (F) | 5 | 4.7% |
| Glicina | Gly (G) | 8 | 7.5% |
| Glutamato | Glu (E) | 8 | 7.5% |
| Glutamina | Gln (Q) | 1 | 0.9% |
| Histidina | His (H) | 0 | 0.0% |
| Isoleucina | Ile (I) | 6 | 5.7% |
| Leucina | Leu (L) | 9 | 8.5% |
| Lisina | Lys (K) | 8 | 7.5% |
| Metionina | Met (M) | 1 | 0.9% |
| Prolina | Pro (P) | 6 | 5.7% |
| Serina | Ser (S) | 6 | 5.7% |
| Tirosina | Tyr (Y) | 0 | 0.0% |
| Triptófano | Trp (W) | 3 | 2.8% |
| Treonina | Thr (T) | 5 | 4.7% |
| Valina | Val (V) | 6 | 5.7% |
Arquitectura: Plegamiento tiorredoxina clásico (βαβαββα) con motivo catalítico WCGPC → WCCPC (Trp22-Cys23-Gly24-Pro25-Cys26) en el loop N-terminal de la hélice α2. 6 cisteínas totales: Cys3, Cys23, Cys24, Cys26, Cys35, Cys48.
Composición Atómica: C₅₂₇ H₈₃₈ N₁₃₈ O₁₆₄ S₇
Vida Media (estimada): 30 h (ret. mamíferos), >20 h (levadura), >10 h (E. coli).
NaTrx-1 (TrxH) de Neltuma alba actúa como el nodo central de transmisión de equivalentes reductores del interactoma antioxidante. Mediante su motivo catalítico de doble cisteína (Cys23 nucleofílica y Cys26 resolutiva), cataliza el intercambio ditiol-disulfuro reversible para reactivar enzimas diana oxidadas como GPX4 y modular por conformación a GST U17:
Trp22 sella el microambiente del motivo WCCPC, orientando estereoespecíficamente los azufres hacia las cavidades de unión de GPX4 y peroxirredoxinas.NaTrx-1 en su estado reducido [Trx-(SH)₂] reconoce electrostáticamente a su proteína diana oxidada (p. ej., NaGPX4 oxidada Cys42-SOH o disulfuro Cys42-S-S-R). La superficie ácida de Trx-1 acopla con el parche básico de GPX4 a menos de 1 Å de distancia.
El azufre de Cys23 ataca uno de los azufres oxidados de la proteína diana, formando un disulfuro mixto transitorio [Trx-S-S-GPX4]. El primer tiol de la proteína diana se libera desprotonado.
La cisteína enterrada Cys26 se desprotona y ataca nucleofílicamente al azufre de Cys23, rompiendo el enlace mixto intermolecular. La proteína diana (NaGPX4) se libera completamente reducida y funcional en su estado nativo.
La enzima flavoproteica dimérica NTR utiliza electrones de alta energía procedentes del NADPH celular (vía fotosíntesis o ruta de pentosas fosfato) y de su cofactor FAD para reducir el puente disulfuro Cys23-Cys26 de Trx-S₂, retornando a NaTrx-1 a su conformación ditiol activa [Trx-(SH)₂].
| Residuo / Motivo | Posición | Propiedad Química | Función Catalítica / Estructural |
|---|---|---|---|
| Cys23 (Nucleofílica) | Motivo WCCPC | Tiolato superficial; pKa ~6.7 | Ataque nucleofílico directo sobre disulfuros diana oxidada |
| Cys26 (Resolutiva) | Motivo WCCPC | Tiol interno; pKa ~9.2 | Ataque intramolecular sobre Cys23; cierre de Trx-S₂ |
| Trp22 | Motivo WCCPC | Anillo indólico apolar | Mantenimiento de la conformación de loop α2 y contacto con diana |
| Cys3, Cys24, Cys35, Cys48 | Estructurales | Cisteínas no catalíticas | Regulación redox por glutationilación y conformación globular |
| Superficie Ácida | Asp28, Glu32, Asp60 | Cargas aniónicas expuestas | Guía electrostática hacia el parche catiónico de GPX4 y GST |
Secuencia completa de NaTrxH (106 aminoácidos)
Rol Reductor de GPXs: La Tiorredoxina H actúa como donador de electrones para la regeneración de GPX4. Después de que GPX4 reduce un hidroperóxido, su Cys42 queda oxidada (Cys-SOH). TrxH reduce este ácido sulfénico mediante un ataque nucleofílico de Cys23, restaurando la actividad peroxidásica de GPX4.
Docking TrxH→GPX4: El acoplamiento HDOCK (score -261.13) posiciona el motivo WCCPC de TrxH a 0.95 Å de la Cys42 de GPX4, una distancia óptima para la transferencia de electrones. La interfaz se estabiliza mediante interacciones electrostáticas entre Lys de GPX4 y residuos ácidos de TrxH.
Oclusión al Sitio G de GST U17: En docking proteína-proteína, TrxH muestra afinidad por la región del Sitio G de GST U17, posicionándose a 1.12 Å de la Ser16 catalítica. Esto sugiere un posible mecanismo de regulación cruzada entre los sistemas GST y Trx/GPX, relevante en condiciones de estrés oxidativo sostenido.
Condiciones Experimentales: Para ensayos de reducción in vitro, se recomienda Tris-HCl 50 mM pH 7.5 + EDTA 1 mM + DTT 2 mM como agente reductor auxiliar. La actividad reductora puede monitorearse mediante ensayo de reducción de insulina (turbidimetría a 650 nm).
🖱️ Interacción básica: Rota con clic izquierdo + arrastrar · Zoom con rueda del ratón · Desplaza con clic derecho + arrastrar · Clic en cualquier átomo para identificar el residuo.
🔴 Motivo WCCPC: Selecciona el badge Motivo WCCPC para resaltar Trp22, Cys23, Gly24, Pro25 y Cys26. Las Cys23 y Cys26 forman el par redox reversible (ditiol ↔ disulfuro) que media la transferencia de equivalentes reductores.
🟢 6 Cisteínas: Cys3 (N-term expuesta), Cys23 y Cys26 (motivo catalítico), Cys24 (adicional en el motivo WCCPC), Cys35 (interna), Cys48 (C-term del dominio).
🔷 Interfaz GPX4: Usa el badge Interfaz Unión GPX4 para visualizar los 7 residuos que median el acoplamiento con GPX4. La distancia de 0.95 Å entre Cys23(TrxH) y Cys42(GPX4) valida la eficiencia de la transferencia electrónica.
La secuencia nativa (341 aa) posee una extensión N-terminal MAPTPTPTPTKKSGSPLPPG... (aa 1–20) rica en Pro-Thr (33% P+T, GRAVY -0.14). No es un péptido señal de corte, sino un linker flexible desordenado (IDR) que actúa como brazo espaciador y favorece la captura por columnas Ni-NTA en el constructo recombinante pET-16b (10xHis). El pI global de la proteína completa es 7.00, mientras que su núcleo globular catalítico plegado (~208 aa) es ácido (pI 4.86, carga -12.8), gobernando el microambiente del sitio activo GWGCPW (Cys81).
GWGCPW.
A diferencia de las GSTs canónicas simples con tríada Ser/Tyr, ApGHR_01 opera como una Glutatiónil-Hidroquinona Reductasa (GHR) dotada de dos cavidades funcionales acopladas a través de la cisteína nucleofílica Cys81 del motivo GWGCPW:
Arg140, Arg254 y Arg255.Phe114, Phe168, Phe170, Trp83).GWGCPW. El ion tiolato Cys81-S⁻ queda protegido entre las pinzas aromáticas Trp79 y Trp83 contra el O₂ fotosintético.
El Glutatión (GSH) ingresa al Sitio G. Las cadenas laterales catiónicas de Arg140, Arg254 y Arg255 actúan como imanes electrostáticos fijando los carboxilatos y aminas del tripéptido, mientras Trp79 aísla el entorno.
En el microambiente alcalino cianobacteriano, Cys81 pierde su protón con extrema facilidad, convirtiéndose en un ion tiolato (Cys81-S⁻) hiper-reactivo dentro del bucle Gly78-Trp79-Gly80-Cys81-Pro82-Trp83.
El cromóforo poliaromático del Azul de Metileno (o Bisfenol A) ingresa a la espaciosa cavidad. Los anillos aromáticos de Trp83, Phe114, Phe168 y Phe170 realizan un emparedado por apilamiento π-π.
A diferencia de las GSTs clásicas que realizan conjugación electrofílica formando aductos GS-X, ApGHR opera como una auténtica oxidorreductasa: el tiolato Cys81-S⁻ cataliza la transferencia de dos electrones (2e⁻ / 2H⁺) al cromóforo catiónico del Azul de Metileno (MB⁺), reduciéndolo de forma concertada a su estado neutro incoloro: Leucoazul de Metileno (LMB).
Cys81 queda transitoriamente oxidada. De inmediato, la molécula de GSH pre-anclada en el Sitio G (desde el Paso 1) ataca y resuelve el intermediario, restaurando a Cys81 a su estado tiolato activo y liberando GSSG.
| Módulo Molecular | Residuos Clave | Función Físico-Química | Distancia a Cys81 |
|---|---|---|---|
| Sitio G (Muelle GSH) | Arg140, Arg254, Arg255, Trp79 | Anclaje electrostático de carboxilatos y protección del donador | 2.80 Å |
| Interruptor Catalítico | Cys81 (motivo GWGCPW) | Ataque nucleofílico y cesión de 2e⁻ en estado tiolato (S⁻) | 0.00 Å (Centro) |
| Cavidad H (Muelle Xenobiótico) | Trp83, Phe114, Phe168, Phe170 | Emparedado por apilamiento π-π sobre anillos aromáticos | 3.46 Å |
| Canal y Entrada Polar | His85, Asn115, Arg175 | Polarización ácido-base y atracción electrostática | Periferia de cavidad |
Secuencia traducida de ApGHR_01 (WP_006619491.1 · 341 aminoácidos)
A diferencia de las GSTs de plantas dependientes de Ser16, ApGHR_01 utiliza Cys81 dentro del motivo ultra-conservado GWGCPW. Cataliza la reducción oxidorreductora directa de quinonas, Azul de Metileno y peróxidos sin formar complejos de adición terminales irreversibles.
Afinidad récord en docking GPU hacia Bisfenol A (ΔG = -7.31 kcal/mol, Kd = 4.4 µM), Atrazina (-6.26 kcal/mol) y Azul de Metileno (-5.81 kcal/mol). La caverna hidrofóbica facilita apilamiento π-π masivo (Phe114, Phe168, Phe170, Trp83) para captura rápida de xenobióticos.
En el citosol alcalino de Limnospira, el tripéptido GSH se encuentra pre-ionizado. ApGHR_01 opera como una chaperona de confinamiento tiólico que protege al ion tiolato GS⁻ contra la autooxidación letal inducida por el O₂ de la fotosíntesis oxigénica activa.
🖱️ Navegación: Arrastra con clic izquierdo para rotar · Rueda del ratón para zoom · Clic derecho para desplazar lateralmente.
🔴 Motivo GWGCPW: Usa el badge Motivo GWGCPW para resaltar Gly78, Trp79, Gly80, Cys81, Pro82 y Trp83. Los dos triptófanos actúan como pinzas aromáticas protegiendo al tiolato Cys81.
🟡 Cavidad H (1,140 ų): Selecciona Cavidad H para ver los residuos que delimitan el bolsillo de biorremediación.
📏 Modo Regla: Mide la distancia entre el azufre SG de Cys81 y cualquier átomo de la cavidad para evaluar la proximidad catalítica.
El parálogo inducible (339 aa) conserva el brazo flexible N-terminal MAPTPTPTKKSGSPLPPG... con una pequeña variación de 2 residuos en la repetición Pro-Thr respecto a ApGHR_01. No es un péptido de tránsito, asegurando continuidad estructural en el vector pET-16b (10xHis). Su pI global completo es 6.32 (levemente ácido), manteniendo un núcleo catalítico central ácido (pI 4.91, carga -12.2) homólogo para el centro activo GWGCPW.
GWGCPW.
ApGHR_02 conserva al 100% el centro catalítico GWGCPW y el muelle electrostático de anclaje de GSH respecto a ApGHR_01 (96.5% identidad global). Sus diferencias residen en sustituciones conformacionales en los bucles periféricos de la Cavidad H, adaptadas para xenobióticos voluminosos y choque foto-oxidativo extremo:
Arg140 y Arg254 a 2.80 Å del tiolato, garantizando la misma velocidad de recarga reductora.GWGCPW con Cys81 (pKa ~6.5) y pinzas aromáticas Trp79/Trp83 asegurando transferencia 2e⁻ libre de autooxidación.Fijación electrostática de alta fidelidad que orienta el sulfhidrilo de Glutatión hacia el núcleo activo.
Activación nucleofílica instantánea en el citosol cianobacteriano sin inactivación oxidativa.
Mayor flexibilidad dinámica para acomodar quinonas oxidadas y xenobióticos de mayor masa molar.
Cesión electrónica directa (2e⁻ / 2H⁺) que reduce cromóforos policíclicos oxidados como el Azul de Metileno a su derivado leuco incoloro, registrable por el abatimiento de absorbancia a 664 nm.
El GSH del Sitio G reduce a Cys81, quedando listo el parálogo para mantener la homeostasis celular bajo estrés.
Secuencia traducida de ApGHR_02 (WP_008050359.1 · 339 aminoácidos)
ApGHR_02 comparte 96.5% de identidad con ApGHR_01 pero posee sustituciones aminoacídicas clave en los bucles flexibles periféricos. Estas variaciones modulan el volumen efectivo de empaquetamiento para favorecer sustratos aromáticos más voluminosos y policíclicos.
Análisis transcriptómicos en cianobacterias filamentosas indican que este parálogo se activa y sobreexpresa selectivamente frente a concentraciones elevadas de metales pesados y estrés oxidativo fotoquímico extremo, actuando como respaldo defensivo.
La secuencia es 100% idéntica a la accesión UWU49205.1 descrita en la cepa industrial C1 de Limnospira, confirmando su estabilidad genómica, conservación filogenética y rol metabólico primario en la microflora espirulífera.
🖱️ Inspección: Rota y haz zoom para explorar la conformación de los bucles periféricos.
🔴 Motivo GWGCPW (Cys81): Al igual que la isoforma canónica, el residuo catalítico central permanece inmutable.
✨ Comparativa Estructural: Alterna entre ApGHR_01 y ApGHR_02 en el selector superior para observar la conservación del núcleo globular redox.
Galería de Bioinformática Estructural y Evolutiva
6 Figuras Científicas DCQB · Clic para ampliarFiguras metodológicas de máxima verosimilitud filogenética, validación de plegamiento y proyecciones multivariadas de Machine Learning del interactoma.
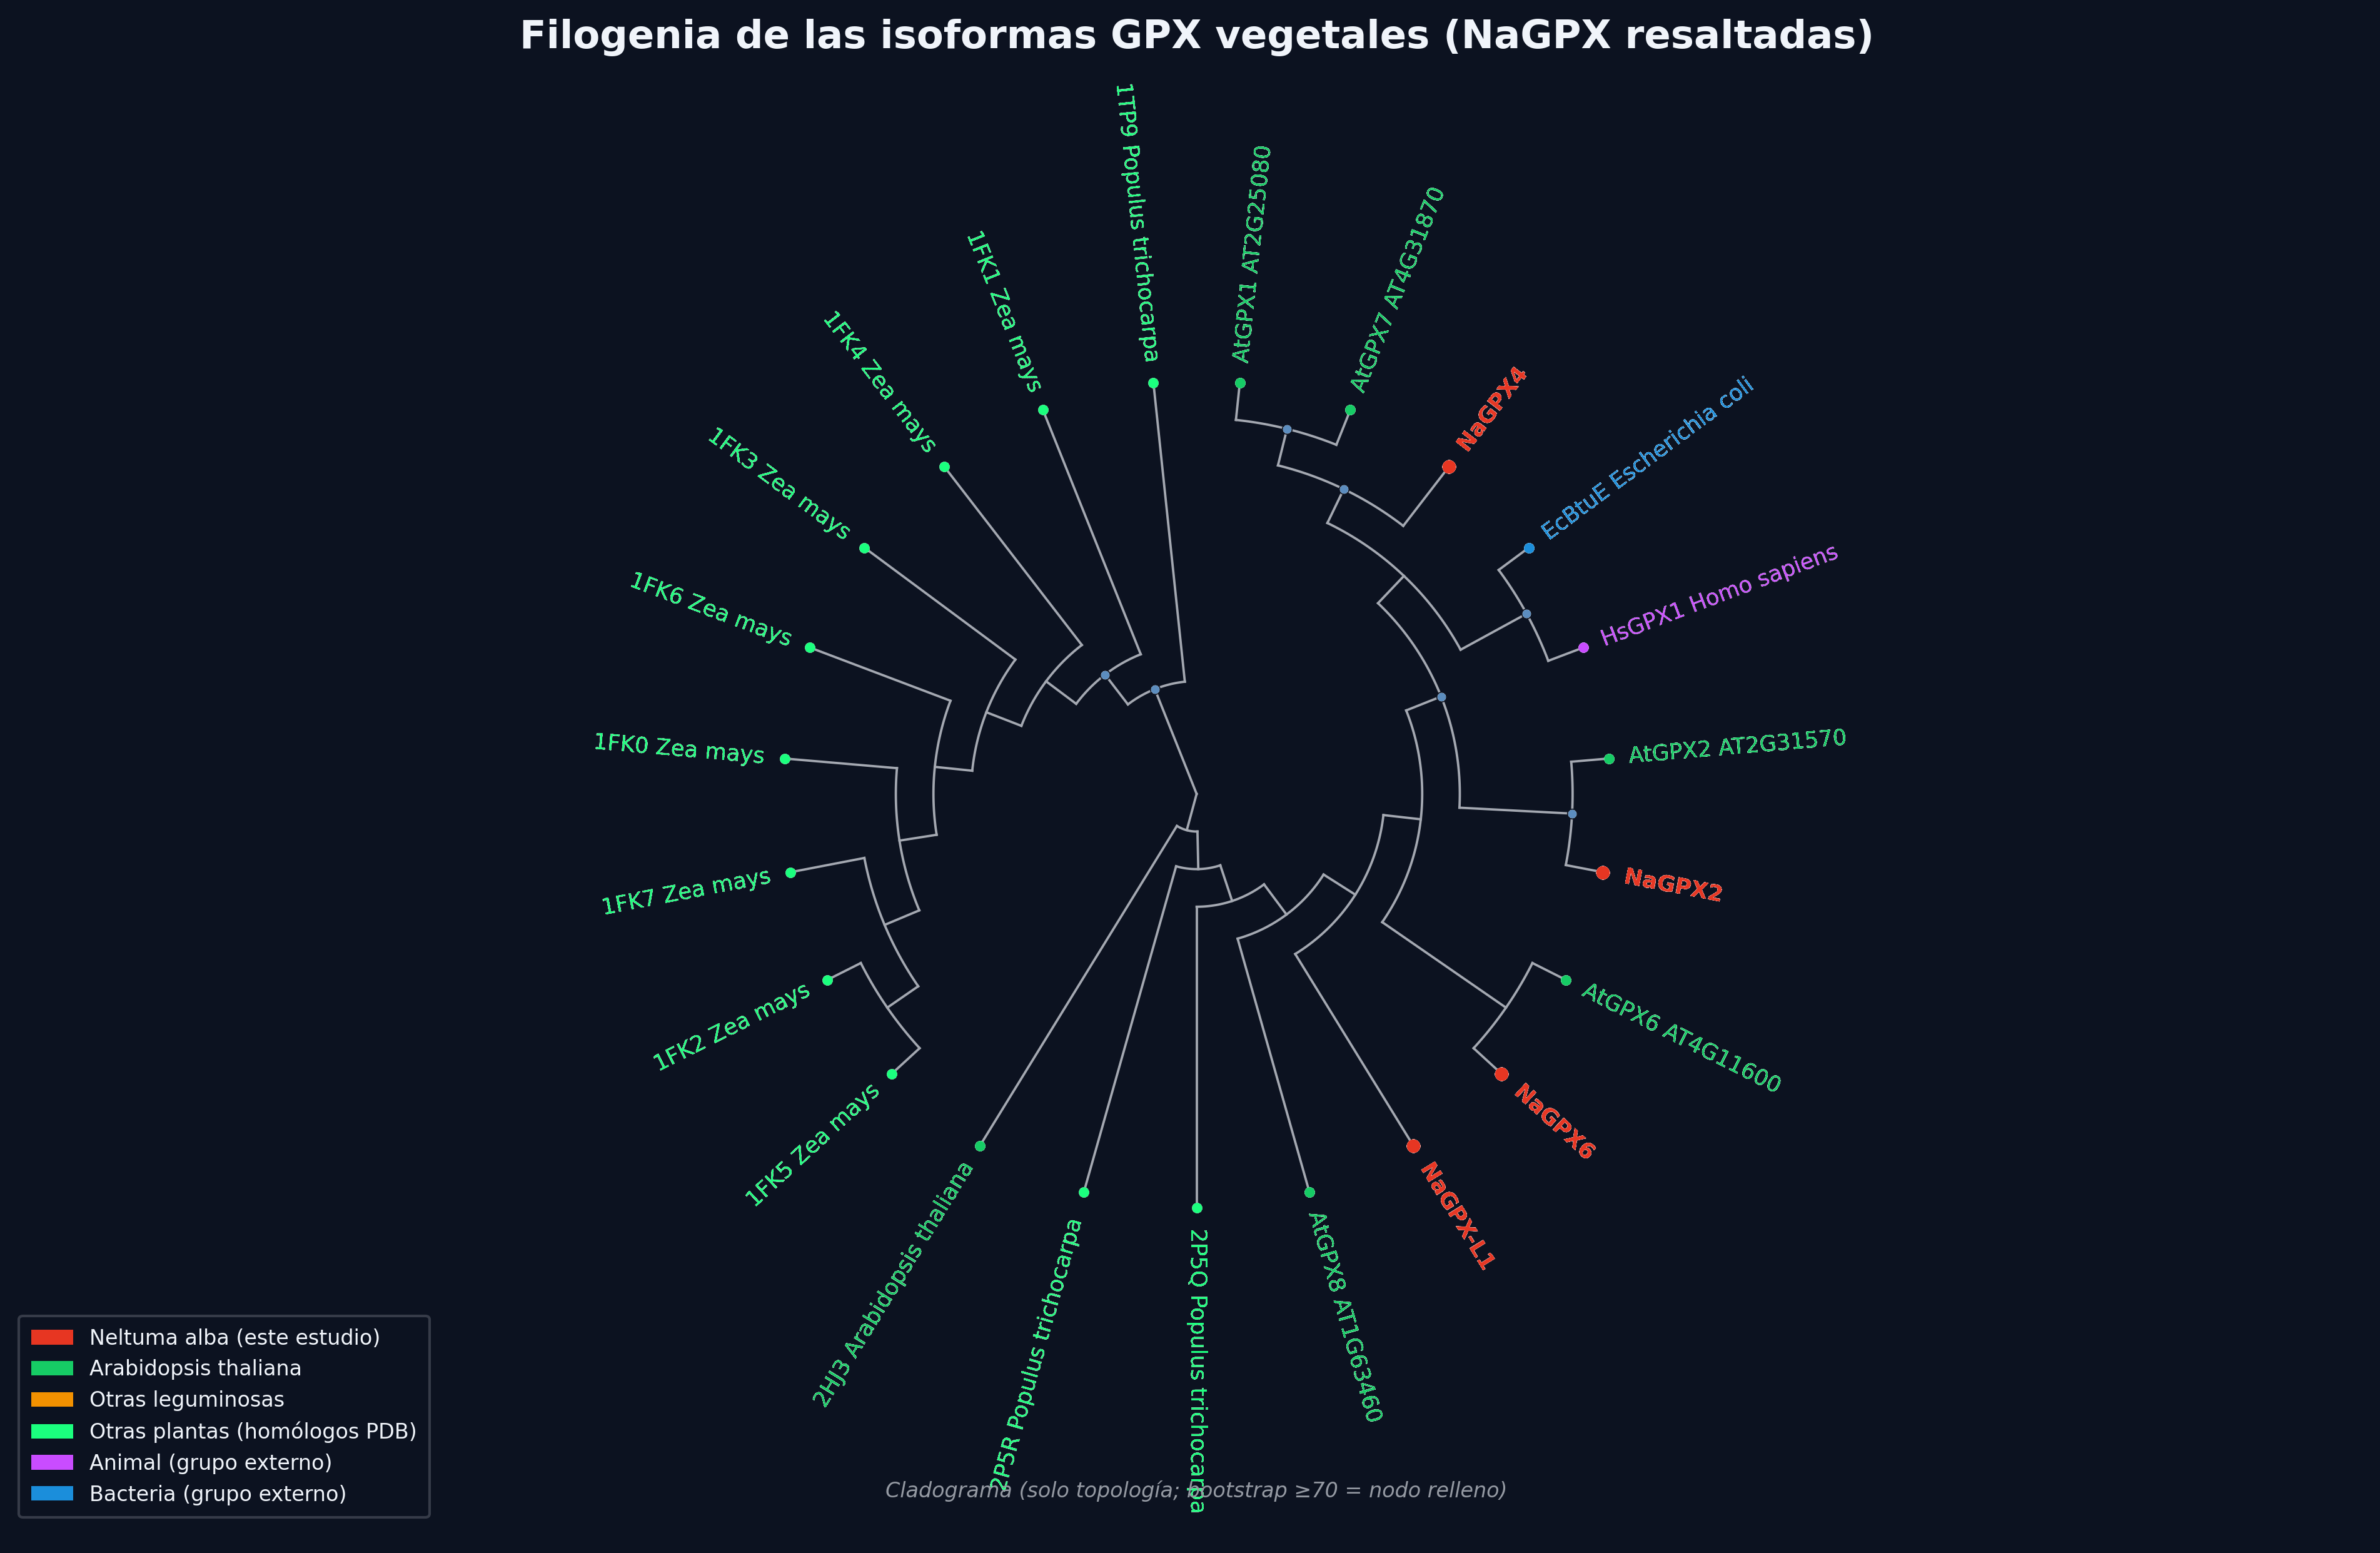
Relaciones evolutivas y clasificación cládica de las isoformas GPX de Neltuma alba.
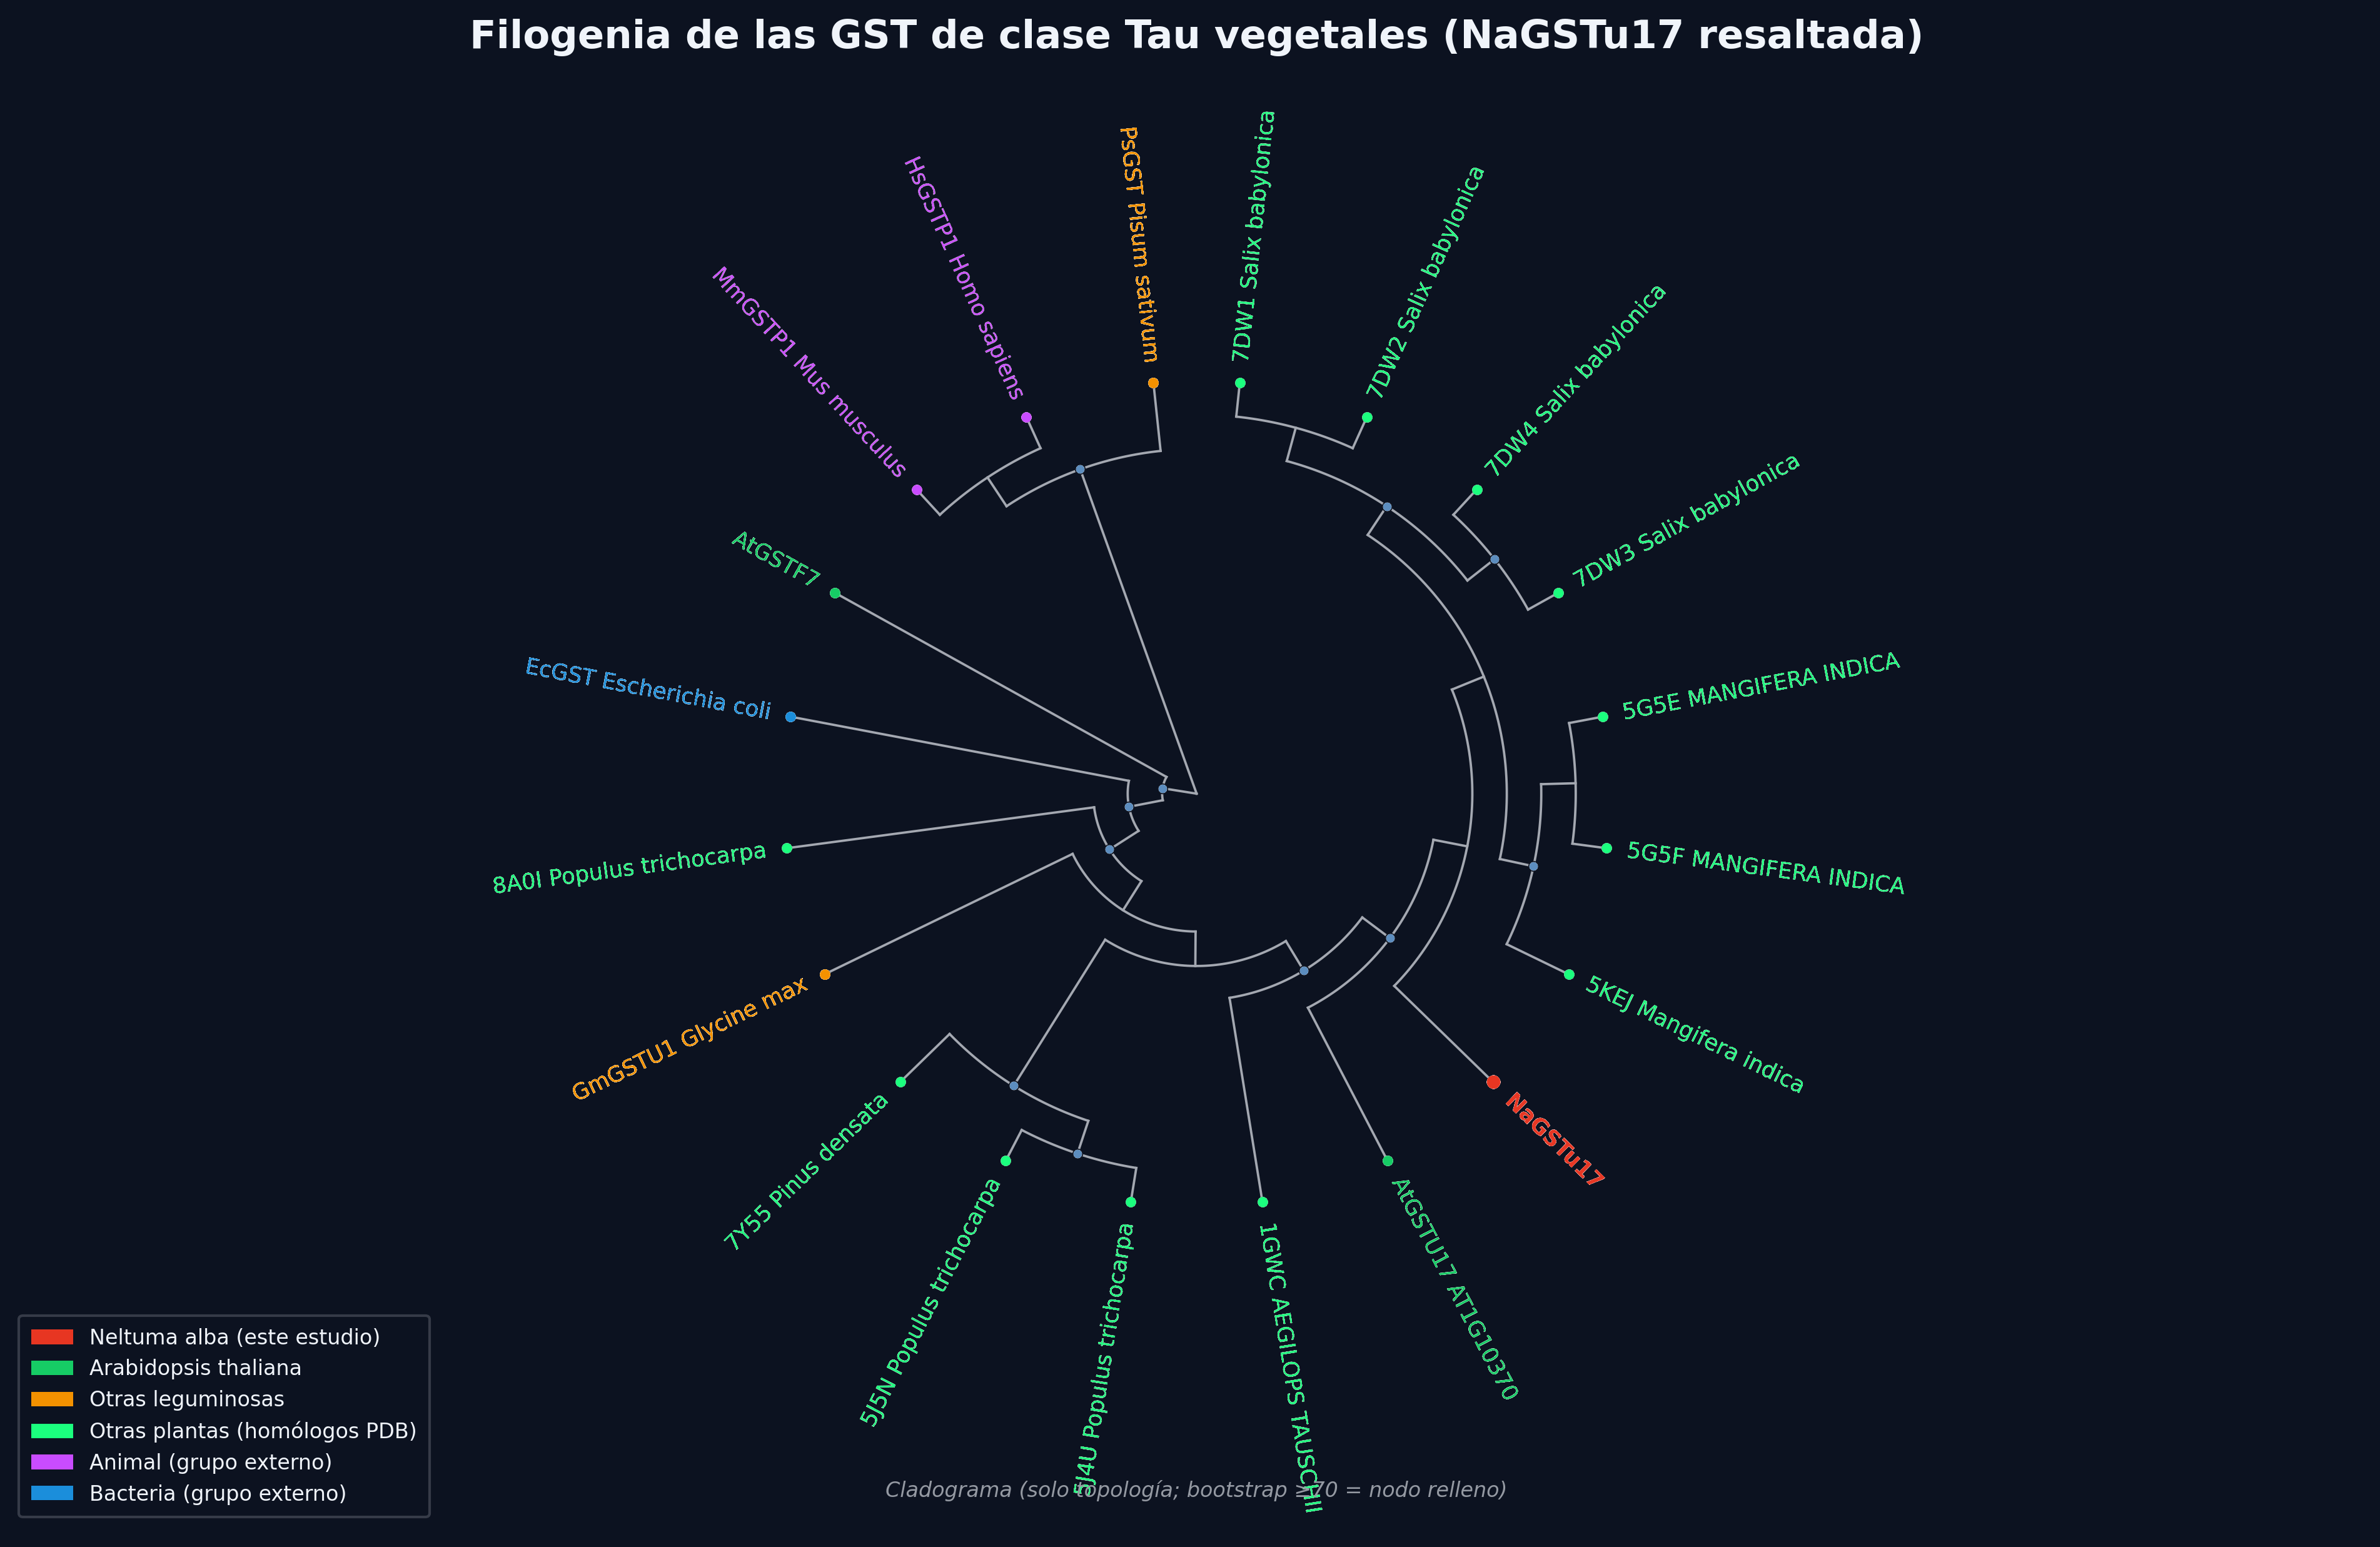
Árbol filogenético y agrupamiento evolutivo de la familia Glutatión S-Transferasa en plantas.
Panel estructural con GPX6 sin péptido de tránsito (noSP), conservando el núcleo 78-238 y Cys113.
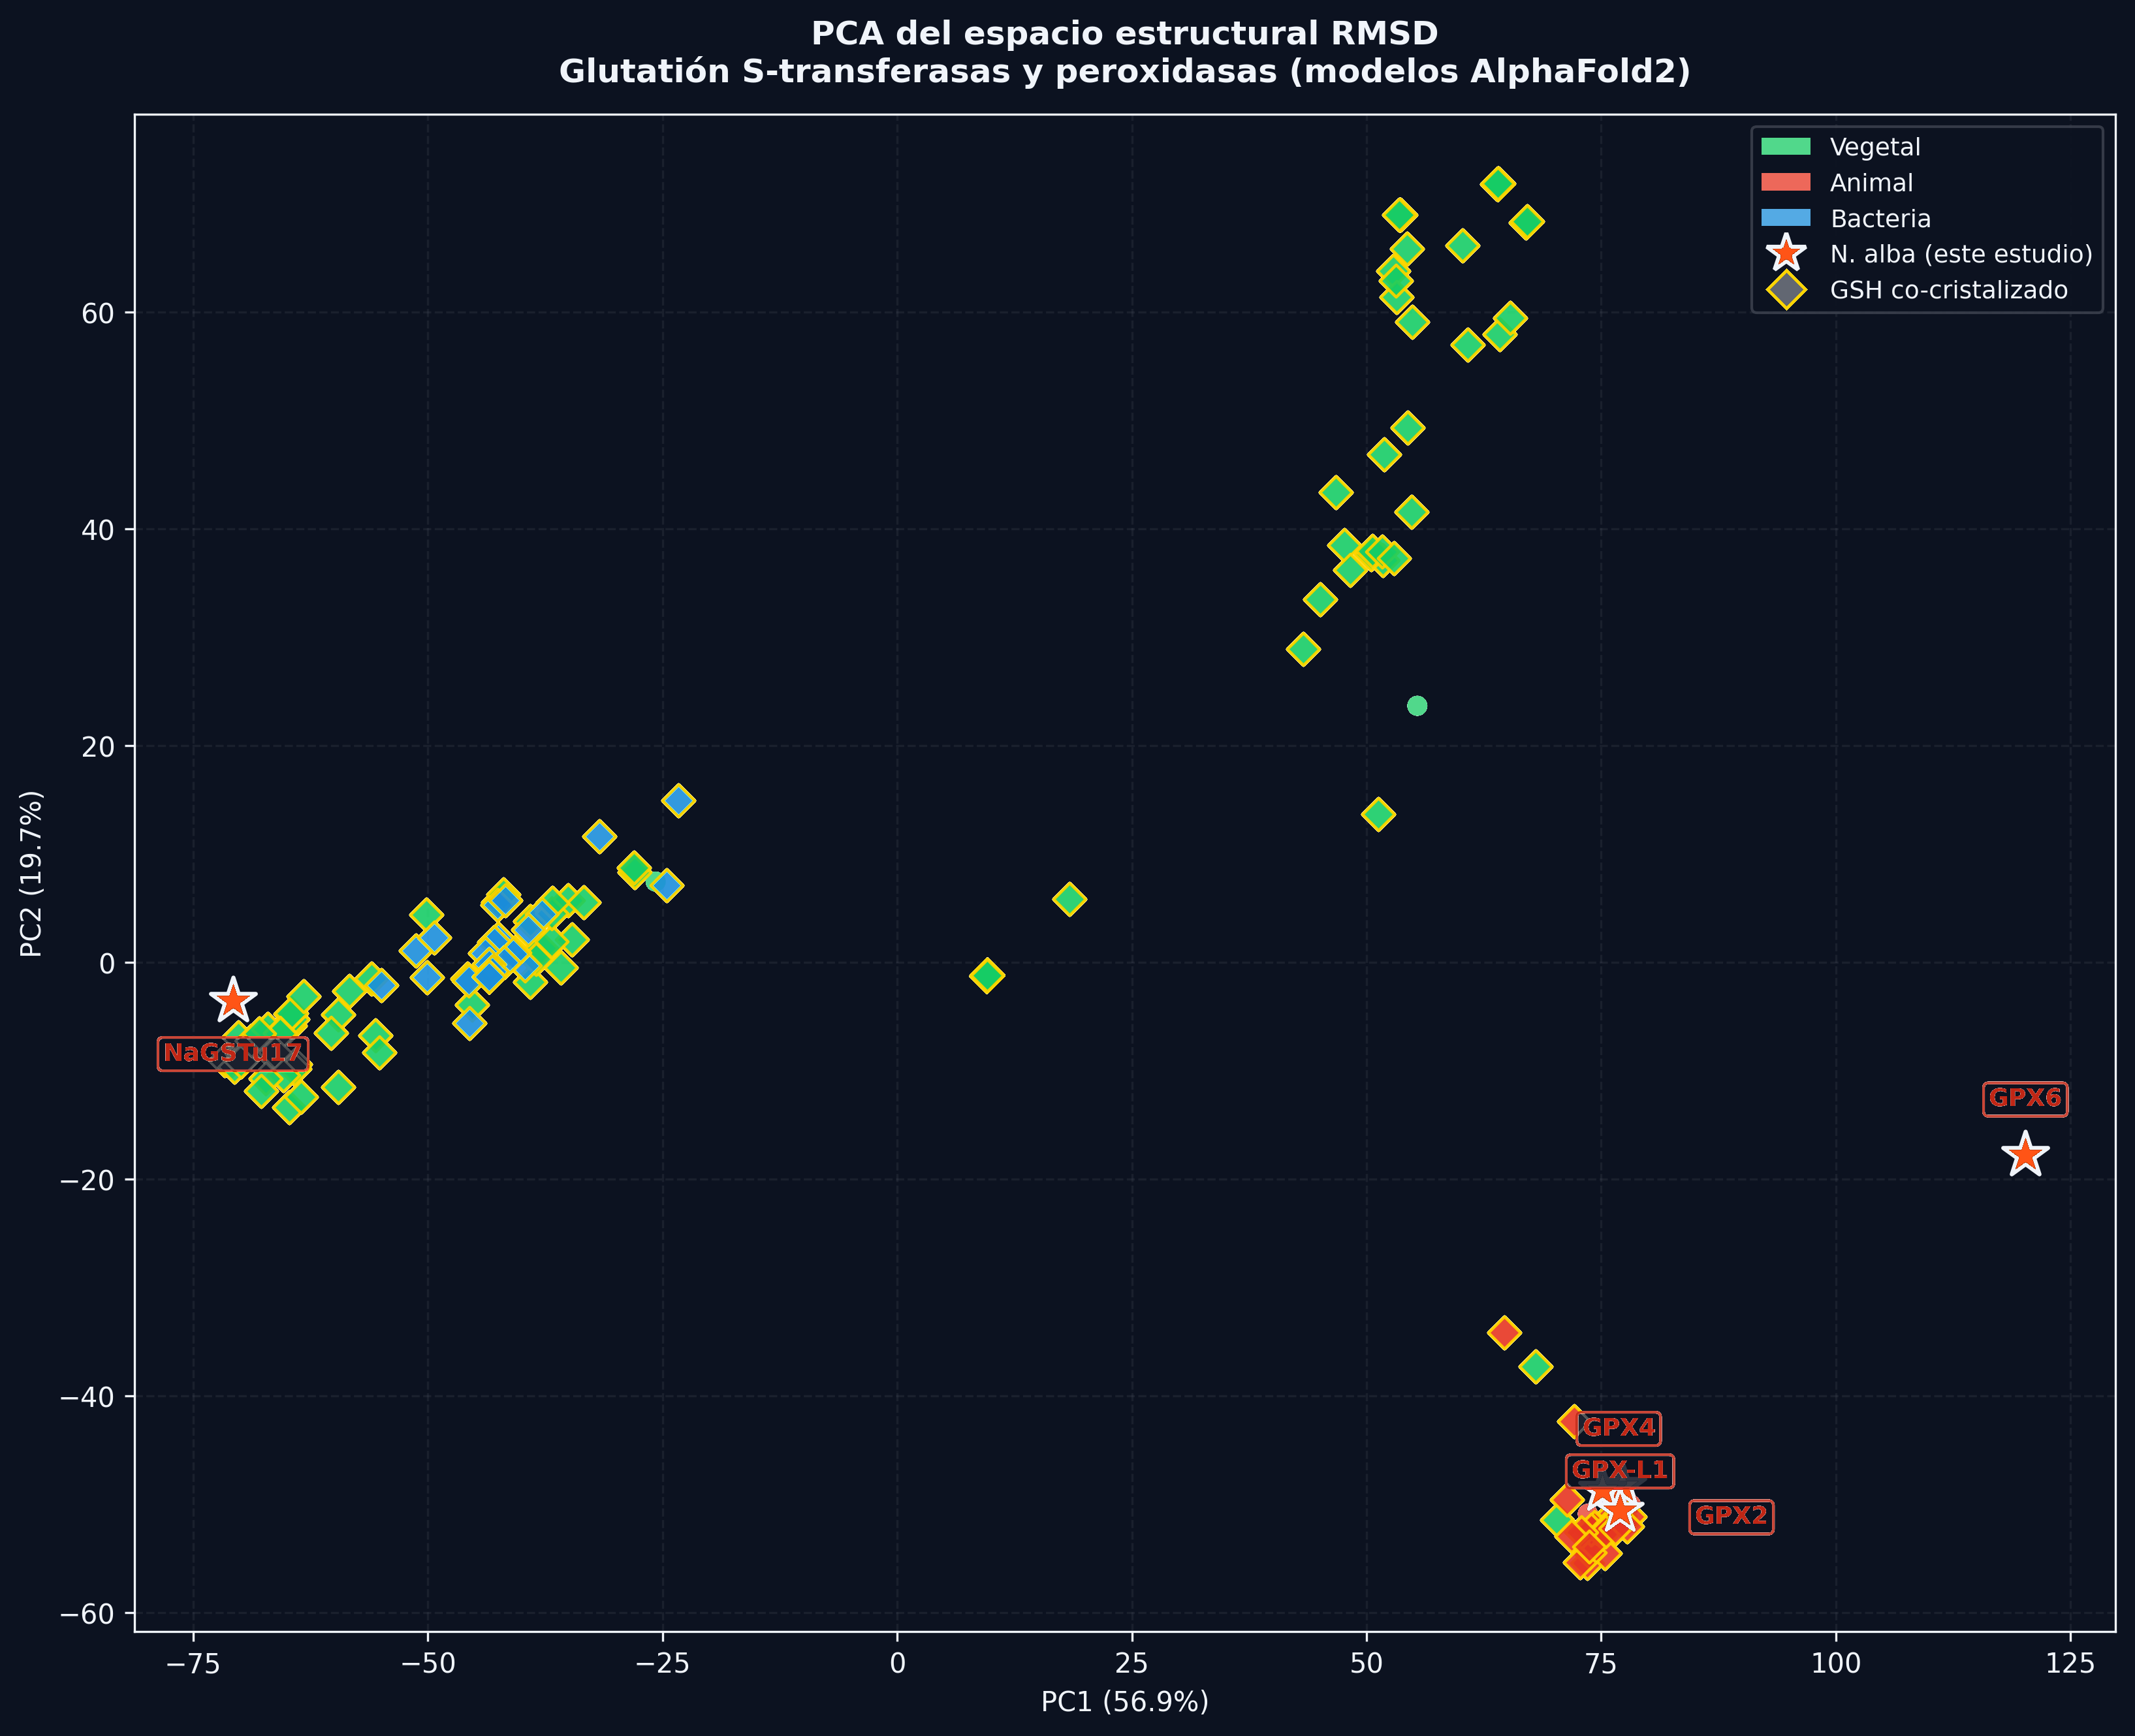
Análisis de Componentes Principales (PCA) del espacio conformacional tridimensional.
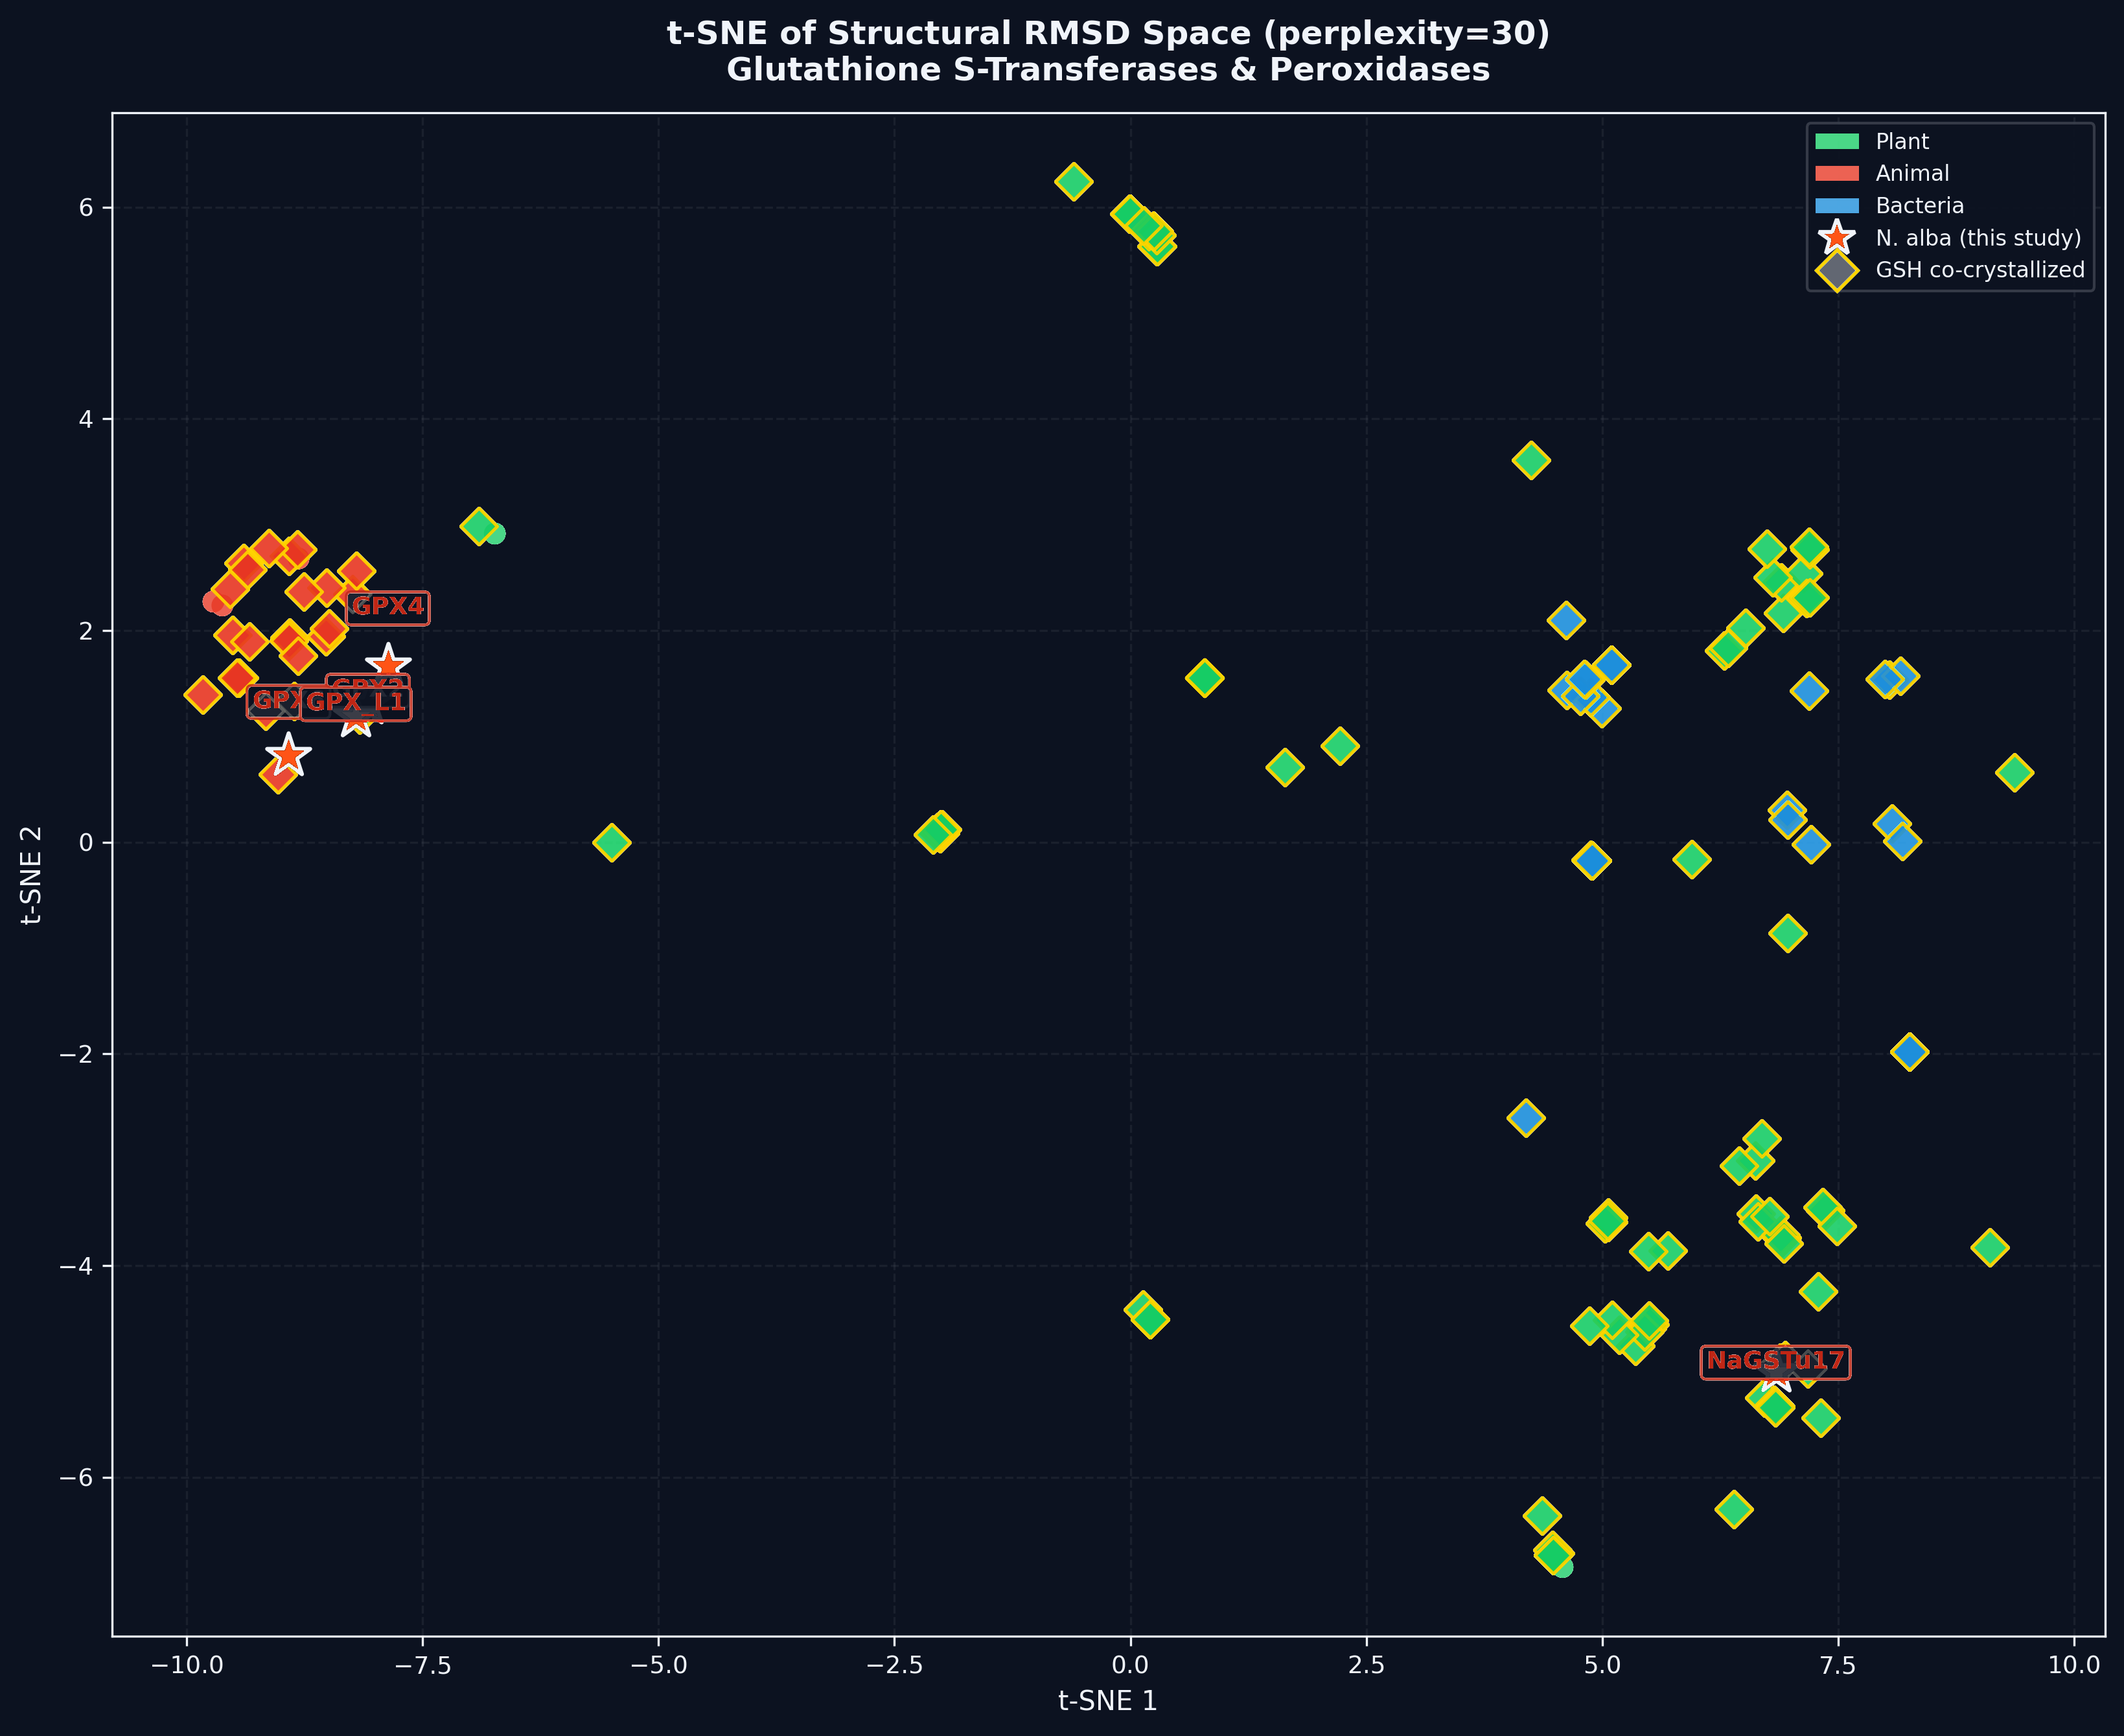
Visualización t-SNE para agrupación no lineal y comparación con homólogos de PDB.
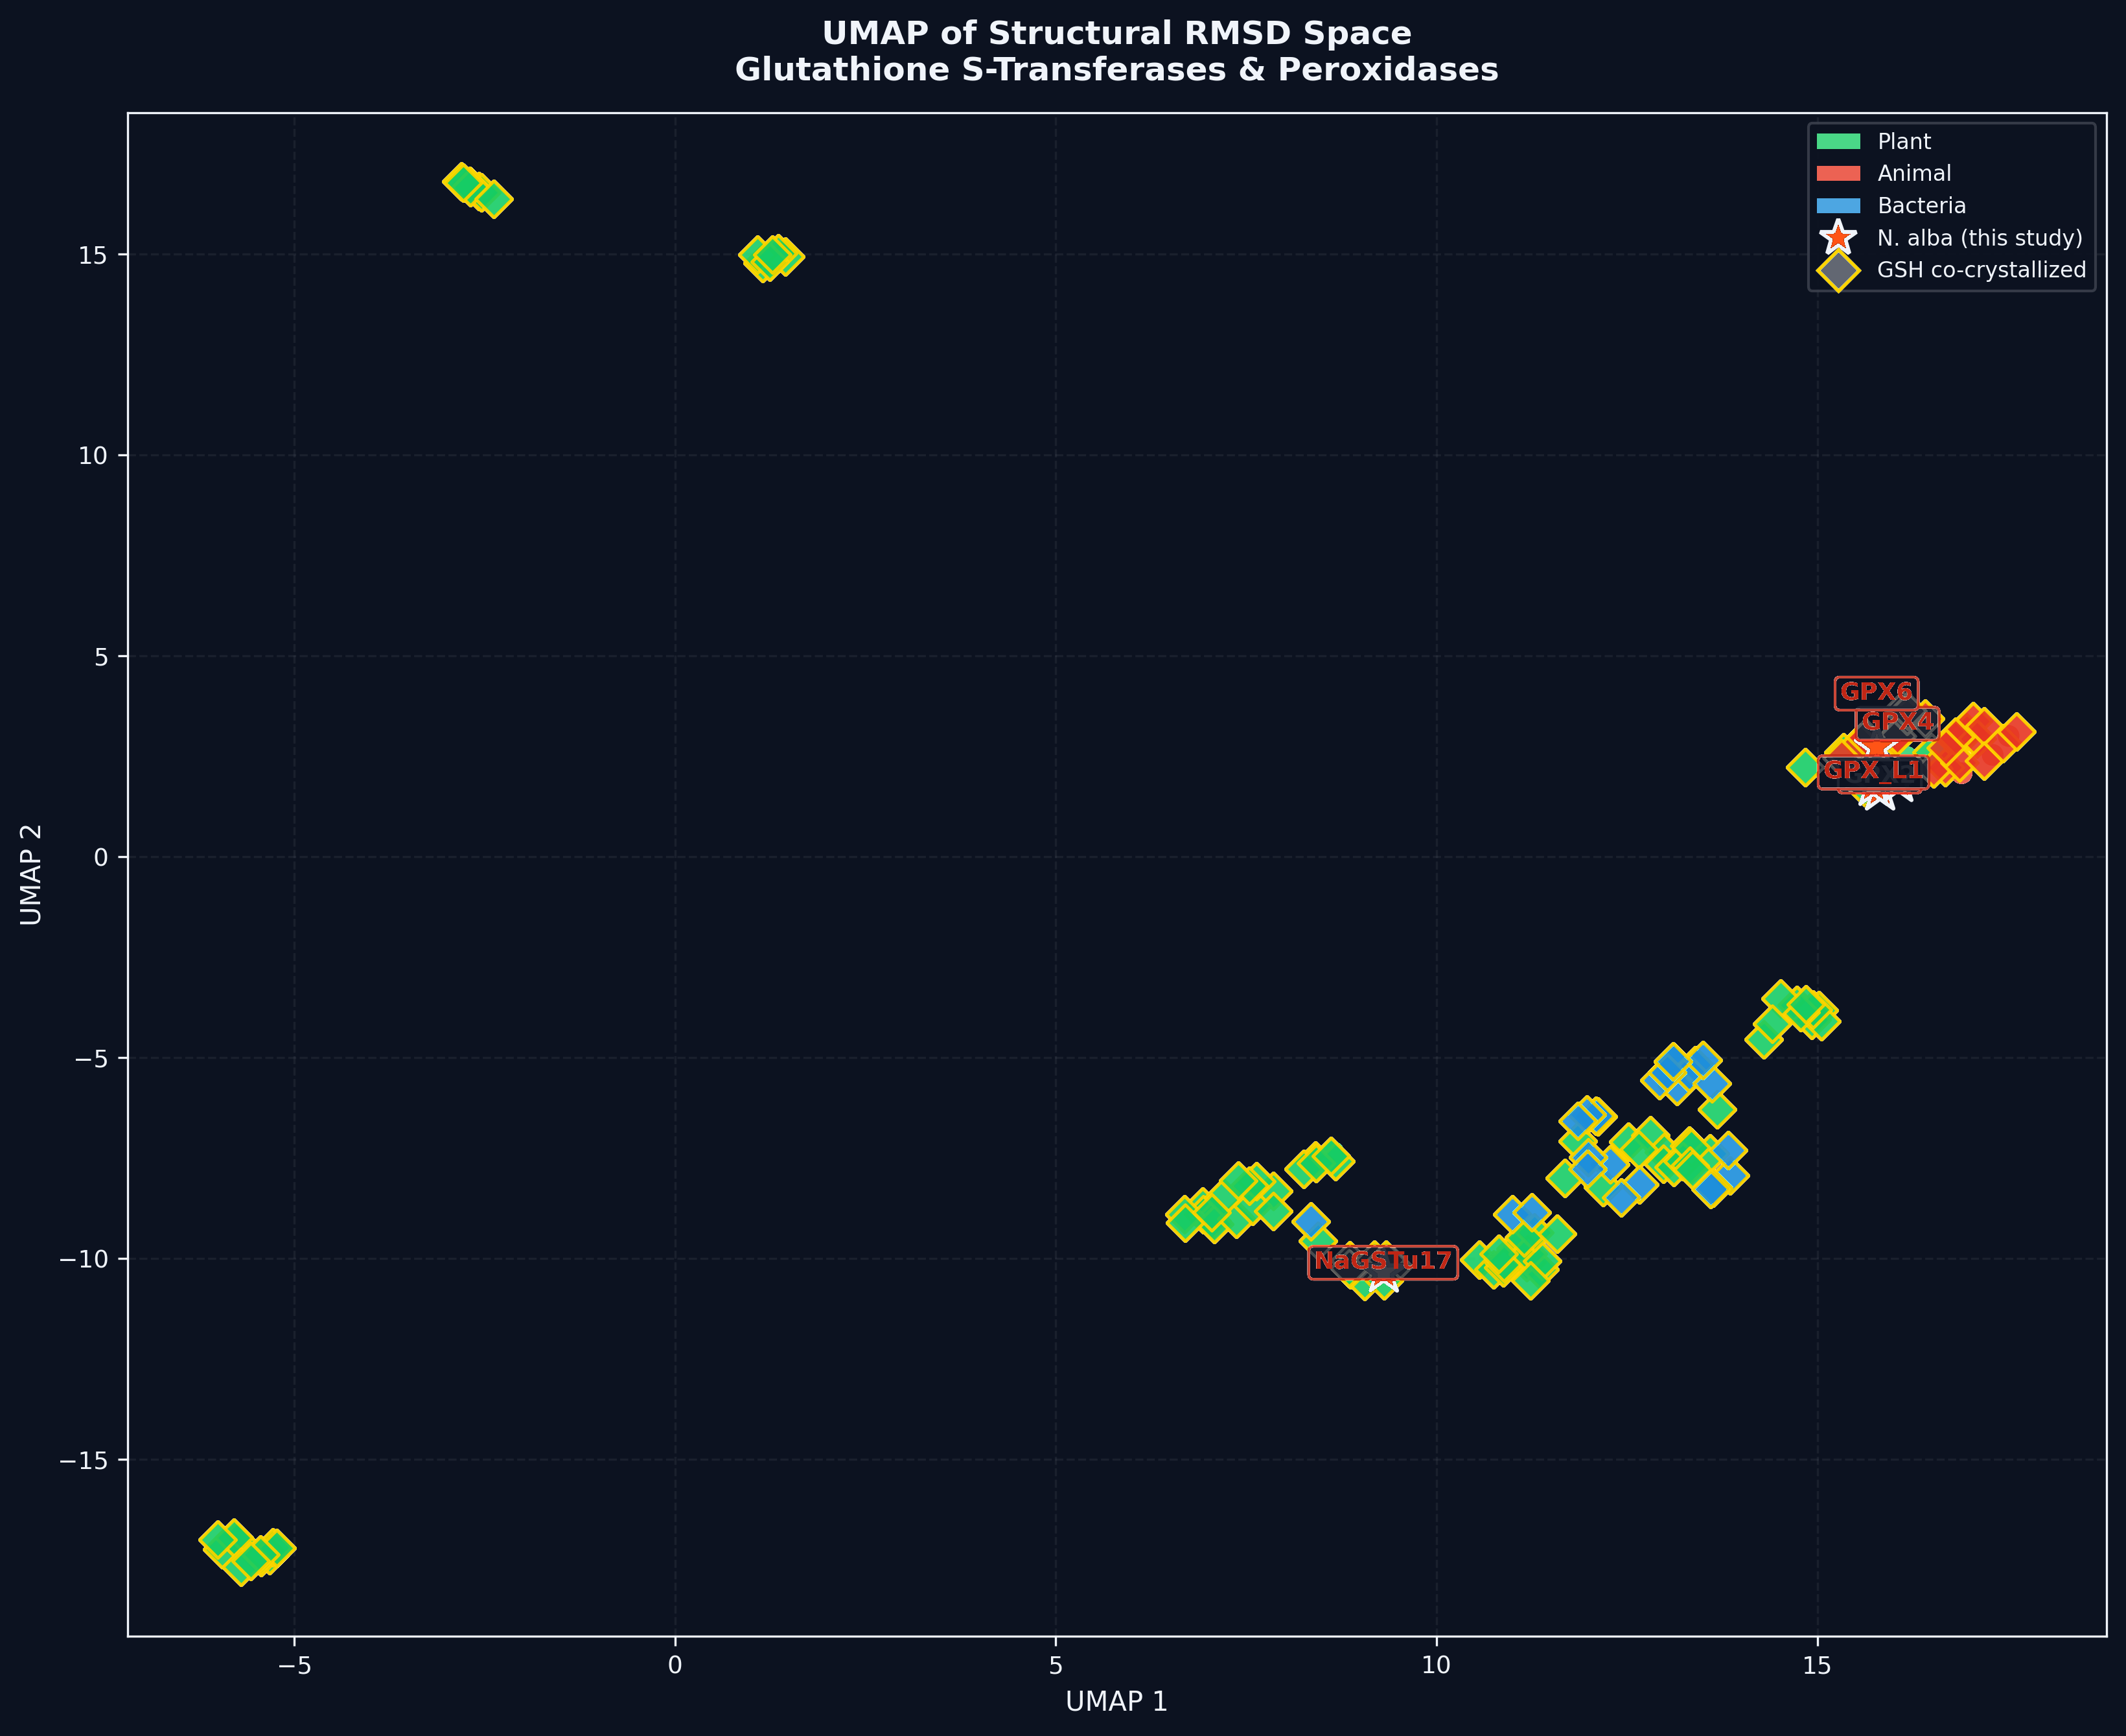
Proyección UMAP de las afinidades conformacionales de GPX y GST en plantas.
Ruta Bioinformática & Metodología Computacional Integrada
Arquitectura metodológica in silico aplicada a las enzimas redox de Neltuma alba (GST Tau, GPX y Trx-1) y a las Glutatiónil-Hidroquinona Reductasas de Limnospira platensis (ApGHR_01 y ApGHR_02). Procesamiento acelerado localmente mediante hardware dedicado: NVIDIA GeForce RTX 4070 Laptop GPU (CUDA) e Intel® Core™ Ultra 9 185H (16 núcleos / 22 hilos).
Descarga y curación de secuencias FASTA desde NCBI y bases genómicas para Neltuma alba y Limnospira platensis. Reconstrucción filogenética por Máxima Verosimilitud con IQ-TREE 3 (selección automática de modelo de sustitución Q.PFAM+I+G4 y 1000 réplicas Ultrafast Bootstrap sobre 71 secuencias cianobacterianas) y generación de Redes de Similitud de Secuencias (SSN) mediante EFI-EST y Cytoscape/NetworkX para resolución de divergencia paráloga.
Cálculo computacional automatizado de parámetros moleculares: punto isoeléctrico teórico (pI), coeficiente de extinción molar (ε280), índice de inestabilidad de Guruprasad, índice alifático de Ikai, hidropatía GRAVY y carga neta dependiente del pH (pH 7.4 en mezquite y pH alcalino extremo 8.4–10 en cianobacterias). Validación comparativa frente a ExPASy ProtParam.
Predicción de alta resolución y modelado comparativo evaluando múltiples plantillas cristalográficas (homología y redes neuronales profundas). Selección de modelos monoméricos y multiméricos por score de confianza pLDDT (> 90) y curación de núcleos catalíticos plegados (recorte de péptidos señal en GPX6 y linkers N-terminales ricos en Pro-Thr en GHRs).
Inspección tridimensional del microambiente activo: dímero canónico y bolsillo de Ser16 en NaGSTu17, tétrada Cys42-Gln77-Trp131-Asn132 en NaGPX4, y motivo ultra-conservado GWGCPW (Cys81 activa desprotonada a tiolato con pinzas aromáticas Trp79/Trp83) en ApGHR_01/02. Mapeo electrostático Coulombic/APBS, cálculo del volumen de la Cavidad H (1,140 Å3), tours 360° y análisis topológico mediante Redes de Interacción de Residuos (RIN).
Parametrización estructural y cálculo de protonación alcalina (pH 8.4–9.5) mediante OpenBabel 3.1 y Meeko (RDKit) para la biblioteca de xenobióticos. Minería y curación de 719 estructuras homólogas en PDB. Acoplamiento molecular flexible acelerado en GPU (AutoDock Vina CUDA): sustratos redox clásicos (GSH, CDNB, H2O2, tBHP), antioxidantes (Quercetina, Kaempferol, Naringenina), xenobióticos y colorantes de biorremediación (Azul de Metileno, Bisfenol A, Menadiona, Atrazina, DCPIP, 1,4-Benzoquinona) e interfaces proteína–proteína con Tiorredoxina TrxH.
Detección determinista de interacciones no covalentes con PLIP 3.0.1 (clasificación geométrica de puentes H, apilamiento π-π y anclaje electrostático crítico de Arg140 para Azul de Metileno) y cálculo del Área de Superficie Accesible al Solvente (SASA en Å2) mediante Biotite (algoritmo Shrake-Rupley con sonda de 1.4 Å en la Cavidad H). Pipeline ad hoc en Python 3 para Distancia Euclidiana Mínima interatómica (≤ 5.0 Å) frente al residuo catalítico reactivo, correlacionada directamente con la cinética experimental en lector FLUOstar Omega (340 y 664 nm).
Referencias bibliográficas
Explora cómo una muestra biológica se transforma en datos y conclusiones confiables antes de la práctica presencial.
La selección reorganiza el enfoque experimental, los retos y las guías recomendadas.
Conecta preparación, medición e interpretación para comprender el flujo experimental completo.
Una ruta interactiva en 6 pasos: haz clic en cada estación para ver qué ocurre en el tubo, por qué se realiza y cómo evitar errores en la mesa de trabajo.
Repasa estos módulos breves. 👇 Haz clic sobre cualquier módulo para desplegar u ocultar sus conceptos y protocolos.
Las enzimas son los catalizadores por excelencia en los seres vivos. Aceleran la velocidad de reacción entre 10⁶ y 10¹⁷ veces sin consumirse en el proceso. La catálisis ocurre en el sitio activo, donde los residuos de aminoácidos estabilizan el estado de transición (ES‡).
Una solución amortiguadora o buffer contiene un ácido débil y su base conjugada. Mantener el pH dentro del intervalo de trabajo limita cambios en la protonación de residuos catalíticos clave (His, Asp, Glu, Cys).
Mantener los tubos en baño de hielo durante la maceración ralentiza la proteólisis y desnaturalización. El objetivo es conservar el extracto frío para preservar la actividad nativa.
En el laboratorio relacionamos absorbancia y concentración mediante la ley de Beer–Lambert: A = ε · c · l. En ensayos enzimáticos se monitorea NADH o NADPH a 340 nm (ε₃₄₀ ≈ 6220 M⁻¹ cm⁻¹).
Cofactores Metalicos: Iones como Mg²⁺, Zn²⁺ o Ni²⁺ coordinan la catálisis y estabilizan cargas intermedias en el sitio activo.
La ecuación de Michaelis–Menten (v₀ = Vₘₐₓ[S] / (Kₘ + [S])) describe la saturación enzimática. La Kₘ es la [S] a Vₘₐₓ/2 y refleja inversamente la afinidad; la constante de recambio k_cat = Vₘₐₓ/[E]ₜ y la relación k_cat/Kₘ determinan la eficiencia catalítica.
La expresión de proteínas recombinantes (ej. NaGSTu17 en vector pET) se induce con IPTG, un análogo no metabolizable de alolactosa que desinhibe al promotor lac/T7.
El metabolismo celular acopla reacciones endergónicas a la hidrólisis de ATP (ΔG°′ = -30.5 kJ/mol). La Carga Energética de Atkinson regula el flujo: valores bajos activan catabolismo y frenan biosíntesis.
Las cianobacterias como Limnospira platensis (syn. Arthrospira platensis) son procariotas fotosintéticos oxigénicos que carecen de cloroplastos verdaderos. La fotosíntesis ocurre en invaginaciones tilacoidales periféricas de su membrana plasmática.
Los ácidos grasos ingresan a la mitocondria vía la lanzadera de Carnitina (CPT-1) para degradarse por β-oxidación en ciclos recurrentes de 4 pasos (palmitato 16C rinde ~106 ATP netos).
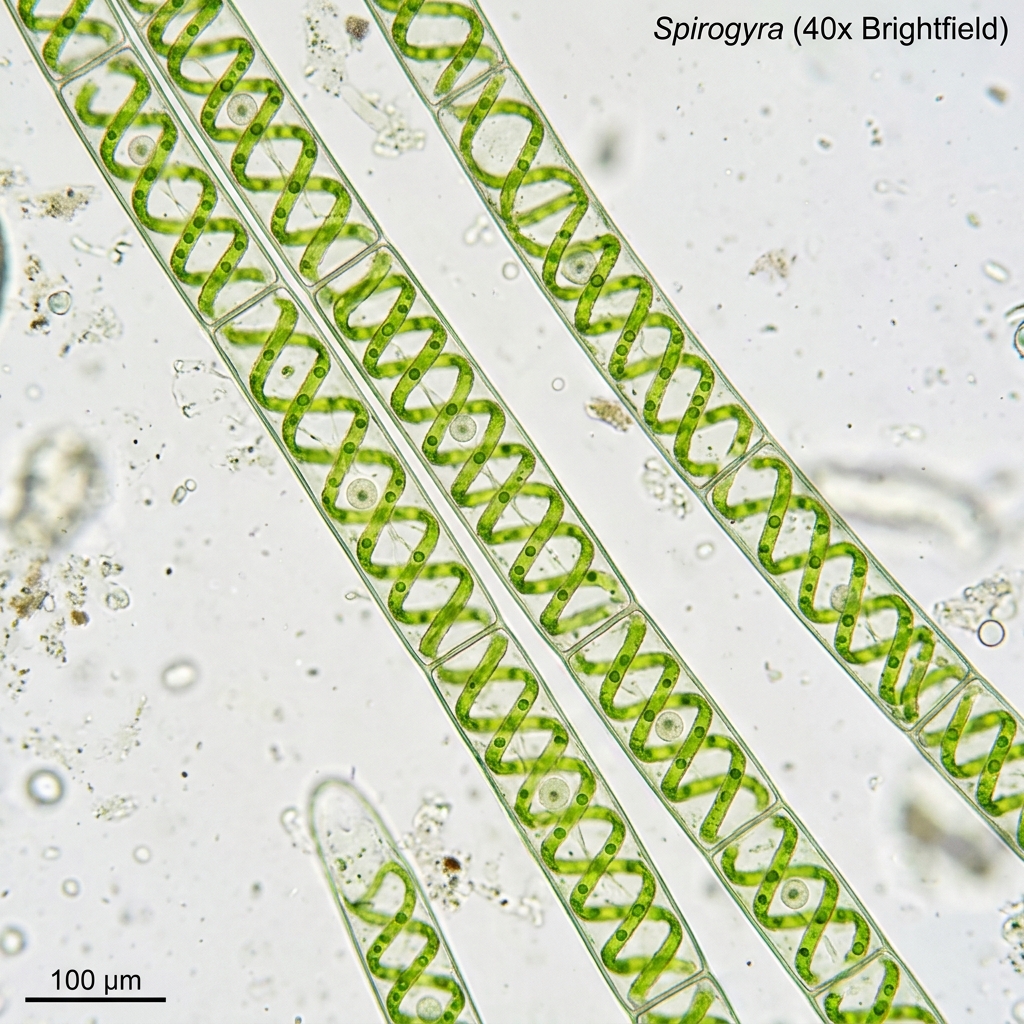
Un recorrido por la ultraestructura, la microscopía y la bioenergética de la espirulina (Limnospira platensis, syn. Arthrospira platensis) y del alga verde filamentosa Spirogyra sp.: dos organismos fotosintéticos que representan los extremos evolutivos de este proceso.
Micrografía a 400× en campo claro sin tinción (10× ocular + 40× objetivo). Las espiras levógiras continuas de Limnospira platensis forman un entramado elástico tridimensional que atrapa microburbujas de O₂ fotosintético para conferir flotabilidad natural al cultivo.
| Parámetro Biofísico / Celular | Limnospira platensis (Procariota) | Spirogyra sp. (Eucariota) |
|---|---|---|
| Linaje Evolutivo | Cianobacteria oxigénica (~2.4–3.5 Ga) | Alga verde carófita (ancestro de plantas terrestres, ~1.0 Ga) |
| Organelos & Compartimentos | Sin núcleo ni cloroplasto; tilacoides periféricos libres | Núcleo verdadero central + Cloroplasto helicoidal en cinta |
| Complejo Antena Principal | Ficobilisomas (C-Ficocianina, Aloficocianina) | Complejo LHCII (Clorofila a, Clorofila b, Luteína) |
| Fijación de CO₂ y Microcompartimento | Carboxisomas con anhidrasa carbónica y RuBisCO IB | Pirenoides intraplastidiales rodeados de coronas de almidón |
| Pared Celular y Vaina | Peptidoglicano Gram-negativo + Vaina mucilaginosa polisacárida | Bifásica: Matriz de celulosa interna + Capa pectínica externa |
| Mecanismo de Propagación | Asexual (necridias + fragmentación de hormogonios mótiles) | Sexual por conjugación escalariforme (zigosporas) y fragmentación |
Reconstrucción tridimensional de la espirulina: una cadena de células cilíndricas enrollada en una hélice que actúa como «panel solar biológico», maximizando la captación de luz en 360° con mínima auto-sombra. Los gránulos azules son los ficobilisomas con C-ficocianina.
Nota: en repositorios como Sketchfab existen modelos fotogramétricos de Limnospira platensis bajo licencia CC-BY, pero requieren su plataforma. Esta reconstrucción procedimental se aloja en el propio sitio para que el material educativo funcione sin depender de servicios externos.
Repertorio estructural de detoxificación redox (ApGST_01 a 04) y fotosistemas de Limnospira platensis.
GHR soluble canónica (341 aa / Core 208 aa, MW = 40.1 kDa, pI = 4.86), proteína no redundante del género Limnospira representativa del linaje NIES-39 (homóloga al 99.71% con la cepa tipo PCC 7345, WP_062945783.1, con variación conservativa S170P). Posee una cavidad catalítica hiper-expandida (1,140 ų) y el motivo ultra-conservado GWGCPW donde Cys81 (pKa ~6.5) actúa como nucleófilo tiolato activo. Presenta afinidad récord hacia Bisfenol A (ΔG = -7.31 kcal/mol, Kd = 4.4 µM), peróxidos de cumeno y pesticidas s-triazínicos (Atrazina).
Mucho antes de que existieran plantas y algas, la fotosíntesis oxigénica fue inventada por las cianobacterias, ancestros procariotas de todos los cloroplastos actuales. Sin ese descubrimiento, el oxígeno jamás habría llenado la atmósfera y no existiría la vida aerobia compleja que hoy estudiamos en el laboratorio.
La fotosíntesis oxigénica podría haber evolucionado desde hace unos 3500 millones de años (Eoarcaico), aunque la fecha exacta sigue en debate. (Horne et al., 2025)
Anomalías de cerio (La-Ce) en carbonatos arcaicos de Canadá confirman producción fotosintética de O₂ en el Mesoarcaico o antes. (Patry et al., Nature, 2025)
El O₂ generado por cianobacterias se acumuló en la atmósfera: la mayor revolución química de la historia terrestre y prerrequisito de la vida aerobia.
Eoentophysalis belcherensis, conservada en estromatolitos silicificados, es el fósil de cianobacteria más antiguo aceptado.
Membranas tilacoidales en Navifusa majensis (Australia) son la evidencia fósil directa más antigua de fotosíntesis oxigénica. (Demoulin et al., Nature, 2024)
Limnospira platensis (espirulina) y el alga verde Spirogyra que observamos en el laboratorio son herederos de esa revolución: producen el O₂ y la biomasa que mantienen los ecosistemas.
Limnospira platensis (espirulina) no solo es un superalimento y una fábrica fotosintética; es también un chasis biológico de remediación ambiental capaz de limpiar efluentes textiles (Azul de Metileno), agroquímicos clorados (Atrazina), plastificantes (Bisfenol A) y metales pesados (Pb²⁺, Cd²⁺, Cr⁶⁺).
La vaina mucilaginosa externa que envuelve los tricomas de espirulina está compuesta por una densa matriz polimérica de exopolisacáridos (EPS) ramificados, con abundante densidad de grupos aniónicos ionizables: carboxilos (-COO⁻), sulfatos (-SO₄²⁻), fosfatos (-PO₄³⁻) e hidroxilos (-OH).
Los xenobióticos que atraviesan la membrana o las especies reactivas de oxígeno generadas bajo estrés inducen una cascada enzimática dependiente de Glutatión Reducido (GSH), NADPH y Glutatiónyl-Hidroquinona Reductasas (GHRs / ApGSTs).
GHR significa Glutathionyl-Hydroquinone Reductase (la "H" refiere a Hidroquinona). No es una Glutatión Peroxidasa (GPX) clásica de selenocisteína; es una rama redox de la superfamilia GST especializada en óxido-reducción de quinonas halogenadas/oxidadas y peróxidos lipídicos tilacoidales.
A diferencia de las GSTs clásicas que solo transfieren glutatión (conjugación SN2), ApGST_01 ejecuta un ciclo redox bifásico: el tiolato de Cys81 ataca al contaminante oxidado (p. ej. Azul de Metileno o Atrazina) y el GSH libre en el Sitio G reduce el intermediario, regenerando la enzima activa y liberando el producto reducido inocuo (Leucoxiazina incolora).
Limnospira platensis prolifera en lagos alcalinos a pH 9.8–10.5, manteniendo un citosol interno regulado a pH 7.8–8.4 y microambientes fotosintéticos carboxisomales que alcanzan pH 9.0–9.5.
A pH fisiológico neutro (pH 7.2), el Glutatión (GSH, pKa = 8.7) está >98% protonado e inactivo, por lo que las GSTs clásicas usan Ser/Tyr para desprotonarlo. Pero en Limnospira a pH 8.4–9.5, el 35% al 85% del GSH citosólico ya se encuentra espontáneamente ionizado como ion tiolato (GS⁻).
La solución evolutiva: El riesgo biológico fatal es la autooxidación del GS⁻ libre con el O₂ fotosintético disuelto (generando anión superóxido O₂•⁻ y agotando el GSH). Por ello, ApGST_01 evolucionó no como una enzima desprotonadora, sino como una chaperona electrostática de blindaje: protege al GS⁻ dentro del motivo conservado GWGCPW y orienta al xenobiótico a <3 Å de Cys81 para una reducción catalítica ultra-rápida (kcat récord).
| Contaminante / Xenobiótico | ApGST_01 (Limnospira) | EcGST Beta (E. coli) | NaGSTU17 (Mezquite) | Selectividad / Mecanismo |
|---|---|---|---|---|
| Bisfenol A (BPA · Plastificante) | -7.31 kcal/mol (4.4 µM) | -6.12 kcal/mol (32.4 µM) | -3.64 kcal/mol (2.1 mM) | Empaquetamiento aromático en cavidad H |
| Peróxido de Cumeno (ROS lipídico) | -6.53 kcal/mol (16.4 µM) | -5.48 kcal/mol (95.5 µM) | -3.37 kcal/mol (3.4 mM) | Ataque nucleofílico directo por Cys81 |
| Atrazina (Herbicida s-triazina) | -6.26 kcal/mol (26.0 µM) | -5.35 kcal/mol (118.9 µM) | -2.62 kcal/mol (12.1 mM) | Descloración / conjugación con tiolato |
| Azul de Metileno (Colorante catiónico) | -5.81 kcal/mol (55.1 µM) | -5.02 kcal/mol (207.6 µM) | -3.84 kcal/mol (1.5 mM) | Reducción redox a Leucoxiazina + Biosorción EPS |
| CDNB (Sustrato modelo GST) | -5.33 kcal/mol (124.5 µM) | -4.67 kcal/mol (375.0 µM) | -2.76 kcal/mol (9.4 mM) | Conjugación clásica dinitrofenil-GSH |
Pon a prueba tu criterio bioquímico resolviendo escenarios evaluables divididos por parciales académicos y según la materia activa.
Modifica los parámetros en tiempo real y compara simultáneamente la hipérbola de Michaelis–Menten con la representación de Lineweaver–Burk.
Observa cómo cada modelo de inhibición modifica la velocidad máxima (Vmáx) y la constante de Michaelis (Km) aparentes.
| # | [S] (mM) | v₀ Teórica | v₀ Exp | 1/[S] (mM⁻¹) | 1/v₀ (min/μmol) | Residuo | Acción |
|---|
Módulo interactivo completo de las Prácticas 5, 6 y 8: efecto de la temperatura (Topt = 50 °C), pH ácido vacuolar (pH 5.0), paro alcalino con KOH y viraje a amarillo canario a 405 nm.
Estudio cinético y mecanístico de la hidrólisis de ésteres de fosfato orgánicos. Exploración interactiva del efecto de la temperatura, el pH, la desnaturalización alcalina y el viraje cromogénico a 405 nm.
Sustrato cromogénico sintético. El fosfato inmoviliza la deslocalización electrónica del grupo nitro. Solución 100% incolora a pH ácido.
El centro bimetálico Fe³⁺-Zn²⁺ hidroliza el enlace fosfoéster, generando p-Nitrofenol (p-NP) + Pi libre. En pH ácido aún permanece incoloro.
El KOH detiene la reacción (desnaturaliza la enzima) y desprotona el fenol (pKa = 7.15), deslocalizando electrones para emitir amarillo canario a 405 nm.
El ensayo con p-Nitrofenilfosfato (p-NPP) es un ensayo de punto final. Observa qué ocurre al detener la reacción con solución alcalina concentrada (KOH / NaOH 0.5 M):
El tubérculo de papa (Solanum tuberosum) y semillas en germinación poseen abundante fosfato inmovilizado en fitatos y azúcares fosforilados. Durante el rebrote celular, las fosfatasas ácidas se sobreexpresan masivamente para reciclar y movilizar ortofosfato inorgánico (Pi) hacia los tejidos en crecimiento.
Evolutivamente reside en dos microambientes clave: 1) La vacuola vegetal (pH 5.0–5.5 mantenido por bombas V-H⁺-ATPasa). 2) La rizosfera (exudada por las raíces para solubilizar fósforo insoluble en suelos ácidos donde los protones liberan minerales).
• Fosfato inorgánico (Pi): Inhibidor competitivo clásico (retroinhibición por producto que compite directamente por el centro activo bimetálico).
• Fluoruro de sodio (NaF): Inhibidor potente que coordina el puente Fe³⁺-Zn²⁺ desplazando la molécula de agua catalítica.
Planifica tus soluciones antes de entrar al laboratorio. La herramienta normaliza las unidades, muestra la ecuación aplicada y advierte cuando una preparación no es físicamente viable.
Usa la concentración final, el volumen, el peso molecular y la pureza declarada del reactivo.
Ejemplo: Tris 50 mM, 100 mL, PM 121.14 g/mol.
Calcula cuántos moles por litro contiene una solución ya preparada.
Se mostrará el resultado simultáneamente en M, mM y μM.
Determina el volumen de stock que debes pipetear y cuánto diluyente agregar.
La herramienta verifica que C₁ sea mayor que C₂.
Estima la composición mediante Henderson–Hasselbalch para un ácido débil y su base conjugada.
Ejemplo didáctico: sistema fosfato, pKₐ 7.21, pH 7.40.
Términos esenciales de bioquímica, cinética, espectrofotometría y fotosíntesis (58 entradas) para que el vocabulario de los retos y módulos quede claro. Usa los filtros para navegar por tema.
Consulte los pesos moleculares estandarizados para preparación de amortiguadores y la literatura científica de alto impacto que respalda cada protocolo.
Masa (g) = Molaridad (M) × Volumen (L) × PM (g/mol) · C₁V₁ = C₂V₂
| Reactivo & Fórmula Química | Aplicación Principal | PM / Stock Molar | Recomendación & Almacenamiento |
|---|---|---|---|
Acrilamida C₃H₅NO | SDS-PAGE | 71.08 g/mol | ⚠️ Neurotoxina. Usar en campana de extracción. |
Persulfato de Amonio (APS) (NH₄)₂S₂O₈ | SDS-PAGE | 228.20 g/mol | ⚡ Iniciador de polimerización. Preparar 10% fresco. |
Azul de Bromofenol C₁₉H₁₀Br₄O₅S | Colorante de frente | 669.97 g/mol | 🎨 Indicador visual del frente de corrida. |
β-mercaptoetanol (BME) C₂H₆OS | Agente Reductor | 78.13 g/mol · 14.26 M | ☣️ Rompe puentes disulfuro. Adicionar en campana. |
CaCl₂ (anhidro) CaCl₂ | Búfer / Cofactor | 110.98 g/mol | 💧 Muy higroscópico. Guardar en desecador. |
CaCl₂·2H₂O (Dihidratado) CaCl₂·2H₂O | Búfer / Medios | 147.01 g/mol | 🧪 Estándar estable para preparar soluciones salinas. |
Ditiotreitol (DTT) C₄H₁₀O₂S₂ | Agente Reductor Cleland | 154.25 g/mol | ❄️ Alícuotas a -20 °C. Sensible a autooxidación. |
Glicerol C₃H₈O₃ | Crioprotector / Viscosidad | 92.09 g/mol · 12.93 M | 🍯 Densidad ≈1.26 g/mL. Dar estabilidad a -80 °C. |
Glicina C₂H₅NO₂ | Ión zwitteriónico SDS-PAGE | 75.03 g/mol | ⚡ Genera el gradiente discontinuo de corrida Laemmli. |
Imidazol C₃H₄N₂ | IMAC (Elución His-tag) | 68.08 g/mol | 🎯 Compite con Histidinas por el Ni²⁺ inmovilizado. |
Fosfato dipotásico (K₂HPO₄) K₂HPO₄ | Búfer / Medios | 174.18 g/mol | ⚖️ Componente básico para búfer de fosfatos (pKₐ = 7.21). |
Cloruro de potasio (KCl) KCl | Fuerza Iónica | 74.55 g/mol | 🧂 Simula ambiente osmótico fisiológico intracelular. |
Fosfato monopotásico (KH₂PO₄) KH₂PO₄ | Búfer Ácido | 136.09 g/mol | ⚖️ Componente ácido del sistema amortiguador fosfato. |
Cloruro de sodio (NaCl) NaCl | Búfer / Lavado IMAC | 58.44 g/mol | 🧼 Previene interacciones iónicas inespecíficas a 300-500 mM. |
Dodecilsulfato de sodio (SDS) C₁₂H₂₅NaO₄S | Detergente Aniónico | 288.38 g/mol | 🫧 Desnaturaliza y otorga carga negativa constante (1.4g SDS/g prot). |
TEMED C₆H₁₆N₂ | Catalizador Polimerización | 116.21 g/mol | ⚡ Acelera formación de radicales libres junto con APS. |
Tris-Base (THAM) C₄H₁₁NO₃ | Búfer Principal (pKₐ=8.06) | 121.14 g/mol | 🌡️ El pH varía significativamente con la temperatura (-0.03 pH/°C). |
Tris-HCl C₄H₁₁NO₃·HCl | Búfer Salino de Tris | 157.60 g/mol | 🧪 Forma protonada lista para ajustar pH con NaOH. |
EDTA C₁₀H₁₆N₂O₈ | Quelante de Cationes | 292.24 g/mol | 🚫 Incompatible con resinas IMAC (desprende Ni²⁺). Inactiva metaloproteasas. |
NiCl₂·6H₂O (Cloruro de Níquel) NiCl₂·6H₂O | IMAC (Recarga de Matriz) | 237.69 g/mol | 🟩 Solución azul-verdosa 0.1 M para regenerar columnas Ni-NTA. |
Glutatión Reducido (GSH) C₁₀H₁₇N₃O₆S | Cofactor & Ensayo GST | 307.32 g/mol | ❄️ Sustrato nucleofílico. Preparar al momento en hielo. |
CDNB (1-Cloro-2,4-dinitrobenceno) C₆H₃ClN₂O₄ | Sustrato Electrofílico GST | 202.55 g/mol | 🟡 Disolver en etanol. Se mide su conjugación a 340 nm. |
IPTG C₉H₁₈O₅S | Inductor Recombinante | 238.31 g/mol | 🧫 Induce expresión heteróloga desinhibiendo el operón lac. Store -20 °C. |
Material audiovisual producido para comunicar la investigación a distintas audiencias.
Podcasts
🔬 Difusión científica
🌿 Divulgación
Videos de Difusión y Divulgación
🔬 Video — Difusión
🌿 Video — Divulgación
Guías de laboratorio, manuales y protocolos de investigación agrupados por materia. Haz clic en cada categoría para explorar.
Estrategia de clonación y sobreexpresión heteróloga en sistemas procariotas (E. coli). Diseño de constructo, inducción con IPTG, lisis celular y verificación por SDS-PAGE.
Protocolo completo para cromatografía de afinidad por metal inmovilizado (IMAC). Flujo de trabajo optimizado para proteínas His-tag en condiciones nativas y desnaturalizantes.
Protocolo dinámico para cuantificación digital semi-cuantitativa con ImageJ/Fiji. Incluye mapa del proceso, pre-procesamiento de geles en escala de grises de 8 bits y análisis correcto de carriles.
Extracción y comparación de actividad enzimática en fuentes vegetales, animales y microbianas. Técnicas de homogenización, centrifugación diferencial y ensayos colorimétricos de actividad.
Determinación de actividad enzimática de LDH. Cinética Michaelis-Menten, cálculo de Km y Vmax en tejido muscular.
Métodos de cristalización para análisis por difracción de rayos X. Condiciones de buffer, precipitantes y técnicas de vapor difusivo (hanging drop / sitting drop).
Cálculo de parámetros cinéticos por el método gráfico y lineal de Lineweaver-Burk (doble recíproco). Incluye ecuaciones explicadas, glosario y fórmulas automatizadas para Microsoft Excel.
Diseño metrológico de microplaca (200 µL). Discriminación entre oxidorreducción GHR (Azul de Metileno @ 664 nm), conjugación canónica GST (CDNB @ 340 nm) y biorremediación activa vs inerte en Limnospira (espirulina).
Efecto de la temperatura, pH, concentración de sustrato y concentración de enzima sobre la velocidad de reacción catalizada.
Determinación de parámetros cinéticos. Curvas de saturación por sustrato, linealización doble recíproca y análisis de mecanismos catalíticos.
Protocolos experimentales integrados: ensayos de actividad enzimática específica, inhibición y efectos de moduladores.
Ensayo ultravioleta continuo para determinación de la actividad de glucosa oxidasa/deshidrogenasa y sustratos metabólicos acoplados.
Aislamiento fraccionado, diálisis y caracterización cinética de fosfatasas o deshidrogenasas a partir de fuentes naturales.
Inmovilización de ureasa en esferas de alginato de calcio. Evaluación del rendimiento de encapsulación, estabilidad operativa y cinética comparativa.
Análisis de reacciones redox en vías metabólicas centrales. Determinación de potenciales de reducción y coenzimas implicadas (NADH/NADPH).
Integración de rutas metabólicas centrales. Análisis de flujos metabólicos y puntos de control enzimático en organismos modelo.
Determinación de parámetros cinéticos celulares. Curvas de crecimiento, tasa específica de crecimiento (μmax) y modelado matemático.
Seguimiento de la vía glucolítica y fermentación alcohólica. Cuantificación de intermediarios metabólicos y producción de etanol.
Determinación de la tasa fotosintética. Extracción y cuantificación de pigmentos cloroplásticos por espectrofotometría.
Método Folch para extracción de lípidos totales. Separación de clases lipídicas por cromatografía en capa fina (TLC) y cuantificación gravimétrica.
Análisis de moduladores sobre el flujo de la glucólisis y represión catabólica en levaduras. Controles, fundamentos del rojo de fenol a 570 nm y esquemas de regulación molecular.
Protocolo experimental de cultivo de algas filamentosas. Mediciones del espectro de absorción cloroplástica, diagramas lógicos de flujo y variables de control ambiental.
Identificación cualitativa y cuantitativa de carbohidratos, lípidos y proteínas en extractos naturales por reacciones coloreadas específicas.
Ensayos de deshidrogenasa succínica. Modulación por malonato (inhibición competitiva) y análisis espectrofotométrico acoplado a colorantes redox.
Estudio temporal de la producción de piruvato y etanol en suspensiones celulares. Cinética de consumo de sustrato bajo distintas presiones de oxígeno.
Estudio de la respiración celular y desacoplamiento de la fosforilación oxidativa. Ensayos con inhibidores de la cadena de transporte de electrones.
Programa académico oficial para la materia de Biomoléculas (CQB-0004-18). Competencias, temas y bibliografía.
Conceptos fundamentales de bioquímica, bioelementos, enlaces químicos e importancia biológica del agua y regulación de pH.
Clasificación de monosacáridos, disacáridos y polisacáridos. Estructuras cíclicas, enlaces glucosídicos y funciones biológicas.
Análisis de quiralidad, carbonos asimétricos, enantiómeros, diastereómeros, epímeros y la proyección de Fischer y Haworth.
Estructura general y clasificación de aminoácidos, propiedades anfóteras y niveles de organización estructural de proteínas.
Cuestionario y temario detallado de repaso enfocado en bioelementos, agua, amortiguadores y estructura de carbohidratos.
Cuestionario de preparación sobre estructura peptídica, proteínas globulares/fibrosas, enzimas y lípidos complejos.
Ejercicios de integración y repaso sobre nucleótidos, estructura de doble hélice de ADN, tipos de ARN y dogma central.
Esquema organizador e integración metodológica de los laboratorios de Microbiología I en torno a tres ejes fundamentales.
Técnicas de siembra por estriado, vertido y dilución en placa. Estrategias de aislamiento para la obtención de colonias puras.
Fundamento teórico detallado de las metodologías de aislamiento y purificación de cepas microbianas.
Clasificación de medios, cálculo de formulaciones y uso del autoclave para la esterilización por calor húmedo.
Fundamentos químicos y protocolos detallados para tinción de Gram, tinción de endosporas y tinción de bacilos ácido-alcohol resistentes.
Infografía anatómica del comportamiento de las paredes Gram positivas y Gram negativas ante reactivos químicos.
Identificador visual interactivo de estructuras fúngicas: hifas, levaduras, conidióforos y principales géneros macro/microscópicos.
Evaluación de la eficiencia de agentes físicos (radiación UV, temperatura) y químicos (desinfectantes y antisépticos).
Agrupación de bacterias por afinidad térmica, requerimientos de pH, salinidad y concentraciones de oxígeno.
Conceptos clave sobre asepsia, antisepsia, desinfección, esterilización y evaluación de espectros antimicrobianos.
Normativas de salubridad e higiene del sector alimentario para la prevención de enfermedades transmitidas por alimentos (ETAs).
Producción de etanol utilizando cepas de Saccharomyces cerevisiae, monitoreo de sustratos y cuantificación aproximada.
Bioquímica del yogurt: interacción metabólica simbionte entre Lactobacillus bulgaricus y Streptococcus thermophilus.
Simulador cronológico interactivo que detalla la variación de acidez, pH y desarrollo sensorial durante el proceso.
Cronograma temático, criterios de evaluación, prácticas de laboratorio y competencias de la materia (CQB-0023-18).
Conceptos sobre calibración instrumental, sensibilidad, selectividad y la instrumentación analítica fundamental.
Resumen de métodos ópticos, espectroscópicos, electroquímicos y cromatográficos utilizados en análisis moderno.
Problemas resueltos de espectrofotometría UV-Visible, ley de Beer-Lambert, absortividad y transmisiones.
Temario de repaso sobre potenciometría, electrodos de referencia y selectivos de iones, y fundamentos cromatográficos.
Procedimientos colorimétricos y de precipitación para la identificación de insaturaciones, alcoholes, cetonas y aldehídos.
Criterios estadísticos para la interpolación lineal, cálculo de coeficientes de determinación y preparación de estándares.
Ejercicios guía para el cálculo de órdenes de reacción, constantes cinéticas y cálculo de la energía de activación.
Simulador cinético que ilustra las variaciones espectrofotométricas de absorbancia del dicromato a lo largo del tiempo.
Extracción de colorantes y metabolitos de plantas. Análisis espectrofotométrico de los extractos crudos.
Extracción ácido-base de principio activo y validación cuantitativa mediante espectroscopía de absorción molecular.
Problemas conceptuales y numéricos de instrumentación analítica, espectrometría y principios de separación cromatográfica.
Clave ilustrada para la identificación taxonómica de tortugas urbanas, su ecología y medidas de preservación (Biol. Carlos Montejo Dávila).
Versión oficial revisada y corregida (16 prácticas completas). Incluye sobreexpresión heteróloga y purificación IMAC de His-GST NaGST U17, 189 tablas encuadradas y referencias APA 7ma ed. (Prueba piloto).
Versión oficial revisada y corregida (15 prácticas + 14A/14B). Reformulación completa de fotosíntesis cuantificable, 259 tablas centradas, reactivos corregidos y enlaces al Interactoma Modular (Prueba piloto).
Manual completo de laboratorio de enzimología: extracción de enzimas, cinética enzimática, factores que afectan la actividad, inhibición y más.
Manual de prácticas del laboratorio de bioquímica metabólica: metabolismo de carbohidratos, lípidos, ciclo de Krebs, cadena respiratoria y más.
Manual oficial de prácticas de laboratorio: espectrofotometría UV-Vis, infrarroja, cromatografía de gases y líquidos (Dr. Díaz Sánchez et al.).
Guía de cumplimiento normativo para la clasificación, envasado, almacenamiento temporal y disposición final de Residuos Peligrosos Biológico-Infecciosos.
Defensa y avances doctorales del 4to semestre: caracterización estructural, docking molecular, sobreexpresión, purificación IMAC, cuantificación Bradford (0.533 mg/mL) y cinética enzimática de NaGST U17 y NaGPX4 en Neltuma alba (Biol. Carlos Montejo Dávila).
Calculadoras y protocolos interactivos del laboratorio — medios de cultivo, búferes, SDS-PAGE, purificación IMAC y ensayo GST.
Puedes localizarme a través de los canales institucionales de la UACJ.
Estudiante Doctoral · Profesor por Honorarios · DCQB · UACJ
Investigador en ciencias químico-biológicas con enfoque técnico y analítico. Mi trabajo combina bioinformática estructural, biología molecular y herramientas de inteligencia artificial para construir flujos de trabajo eficientes en la caracterización de proteínas. Actualmente desarrollo mi tesis doctoral sobre el sistema redox del glutatión en Neltuma alba bajo la dirección del Dr. Ángel Gabriel Díaz Sánchez y la Dra. Lilian González Segura. De manera paralela, me desempeño como profesor honorario en la UACJ, impartiendo Bioquímica Metabólica y automatizando los procesos de evaluación y retroalimentación de mis estudiantes. Me interesa la intersección entre la ciencia experimental y la automatización — desde scripts de validación de docking hasta aplicaciones web para la gestión académica.
Este sitio está diseñado para crecer. La idea es que sea una plataforma abierta donde compañeros del laboratorio publiquen infografías, artículos, guías y resultados experimentales. La ciencia avanza más rápido cuando se comparte — si te interesa colaborar o tienes preguntas, escríbeme.
🎓 Asistente docente offline · local-first
Toma asistencia en segundos, califica con ponderación automática y exporta a Excel. Sin internet, sin suscripciones — todos los datos en tu dispositivo.
El desarrollo y despliegue de Interactoma Modular representa un esfuerzo por integrar la investigación biológica con la autogestión tecnológica (Self-Hosting). Este diagrama ilustra el ciclo de vida de la plataforma: desde su diseño estático utilizando el framework Astro v6 con asistencia de Inteligencia Artificial, hasta su alojamiento independiente en un nodo local Orange Pi 5 Max.
El servidor, impulsado por un procesador Rockchip RK3588 (8 núcleos) y 16 GB de RAM en entorno Ubuntu 24.04, mantiene el sitio en línea mediante el gestor de procesos PM2. Para garantizar la seguridad, el rendimiento global y evitar la apertura de puertos en la red local, todo el tráfico web se enruta de forma cifrada a través de un túnel inverso de Cloudflare hacia el dominio principal.
Para configurar el reinicio automático del servidor de producción ante reinicios accidentales del Orange Pi 5 Max:
sudo env PATH=$PATH:/usr/local/bin pm2 startup systemd -u carlos --hp /home/carlosNota: Copia y ejecuta la línea generada por PM2 en la terminal para registrar el servicio con systemctl.
pm2 saveEsto guardará el proceso de Node con nombre "interactoma" en la configuración persistente.
El estado del daemon de autostart puede controlarse mediante systemctl status pm2-carlos.service.
Ciclo de vida del despliegue: Desarrollo asistido por IA, generación estática (Build) y Self-Hosting seguro (Nodo RK3588).
Colabora aportando material científico para el sitio, comparte retroalimentación o suscríbete como estudiante o visitante.