Cultivo Experimental de
Algas Filamentosas
Introducción y Objetivo
Esta práctica se enfoca en el aislamiento y cultivo axénico de algas filamentosas obtenidas de cuerpos de agua del Parque Central. El objetivo principal es evaluar la capacidad fotosintética mediante la observación cuantitativa de la generación de burbujas de oxígeno (O2) atrapadas en la matriz de agar solidificado, bajo condiciones de iluminación controlada y variable.
La elección de un medio inorgánico (libre de carbono orgánico asimilable) actúa como un filtro metabólico selectivo: los organismos heterotróficos como el zooplancton y la mayoría de bacterias se ven privados de sustrato energético, otorgando ventaja competitiva total a las algas autótrofas fotosintetizadoras.
A mayor densidad de flujo de fotones fotosintéticos (PPFD), mayor actividad del Fotosistema II y mayor producción de O2 por la fotólisis del agua, observable como mayor densidad de burbujas atrapadas en el agar. Las placas en oscuridad absoluta mostrarán consumo neto de O2 (respiración celular) sin producción fotosintética, manifestándose como ausencia total de burbujeo. Secundariamente, se espera que una mayor concentración de nutrientes inorgánicos (3 mL vs. 1.5 mL / 200 mL) favorezca la biomasa y la intensidad de pigmentación, pero no compense la ausencia de irradiancia como factor limitante primario de la fotosíntesis oxigénica.
Diagrama de Proceso
Receta y Formulación Técnica
Muy bajo (<0.1 mL/100mL): nutrientes insuficientes, clorosis temprana.
Bajo (0.1–0.25 mL/100mL): crecimiento subóptimo, viable para fases de adaptación.
Óptimo (0.25–0.85 mL/100mL): rango recomendado para biomasa silvestre eutrófica.
Elevado (0.85–1.0 mL/100mL): monitorear precipitados blanquecinos de fosfato de Ca.
Demasiado alto (>1.0 mL/100mL): riesgo de estrés osmótico e inhibición del crecimiento.
Los valores calculados representan una guía experimental de referencia, no una receta fija. En el contexto del diseño factorial de esta práctica, es posible preparar un segundo lote de medio utilizando 3 mL de PISUMMA por cada 200 mL de agua destilada, con el objetivo específico de evaluar el efecto de una mayor disponibilidad de nutrientes sobre el crecimiento y la actividad fotosintética del alga.
El uso de 3 mL es fisiológicamente informativo y experimentalmente justificado: las algas filamentosas de origen eutrófico toleran y, en muchos casos, se benefician de concentraciones elevadas de nitrógeno y fósforo durante las fases iniciales de crecimiento. Sin embargo, el estudiante debe considerar los siguientes aspectos al interpretar los resultados de este tratamiento: concentraciones superiores a 1.5 mL/100 mL pueden generar un potencial osmótico más negativo en el medio, ejerciendo estrés osmótico sobre los filamentos si el alga no está adaptada; la mayor disponibilidad de fósforo puede alterar la regulación de la síntesis de fotopigmentos, modificando la respuesta basal del aparato fotosintético; y el exceso de nutrientes puede favorecer la proliferación de microorganismos contaminantes, complicando la interpretación de los resultados. El factor dominante sobre la producción de O₂ sigue siendo la irradiancia (PPFD) — los nutrientes actúan como moduladores secundarios, no como inductores de la fotosíntesis.
Perfil Nutricional del Fertilizante PISUMMA
| Macronutrientes | % | Micronutrientes | % | Vitaminas / Otros | % |
|---|---|---|---|---|---|
| Nitrógeno Total (N) | 5.0% | Hierro (Fe) | 0.50% | Tiamina (B₁) | 0.10% |
| Fósforo (P₂O₅) | 10.0% | Zinc (Zn) | 0.50% | Cisteína | 0.05% |
| Potasio (K₂O) | 5.0% | Manganeso (Mn) | 0.20% | Quelantes orgánicos | — |
| — | — | Boro (B) | 0.10% | Diluyentes inertes | — |
| — | — | Magnesio, Cobre, Cobalto, Molibdeno | trazas | — | — |
Diseño Experimental
Se evaluará el efecto de la intensidad luminosa sobre la tasa de fotosíntesis oxigénica, utilizando lámparas de luz blanca fría (espectro fotosintéticamente activo, PAR) con cuatro tratamientos: alta luz, luz media, luz baja y oscuridad absoluta. Cada nivel de luz se combinará con dos concentraciones de medio (diseño factorial — ver Sección 06).
¿Qué es el PPFD? El PPFD (Photosynthetic Photon Flux Density) cuantifica la cantidad de fotones en el rango de 400–700 nm que incide sobre una superficie por unidad de tiempo y área, expresada en µmol fotones · m⁻² · s⁻¹. A diferencia de la iluminancia en lux, que mide la percepción humana de la luminosidad, el PPFD cuantifica directamente los fotones que el Fotosistema II puede absorber y transducir en energía química. Es la unidad fisiológicamente más relevante para describir el ambiente luminoso de un alga.
¿Por qué medirlo? Sin un valor de PPFD registrado, los términos "luz alta" y "luz baja" son subjetivos e irreproducibles entre grupos de laboratorio. Medir el PPFD real de cada tratamiento permite: (1) construir una curva de respuesta lumínica cuantitativa, (2) estimar el punto de compensación lumínica de la cepa, y (3) comparar resultados entre equipos con rigor experimental.
Instrucción práctica: Cada equipo deberá medir el PPFD en la posición exacta de cada placa Petri usando una aplicación de smartphone de acceso libre, como Photone – Grow Light Meter (iOS/Android) u otra equivalente calibrada para µmol/m²/s. Colocar el sensor del teléfono sobre la superficie del agar antes de inocular. Registrar el valor medido para cada tratamiento en la tabla de la Sección 06.
Valores de referencia orientativos: Punto de compensación lumínica algal ≈ 5–20 µmol/m²/s · Saturación fotosintética ≈ 100–300 µmol/m²/s · Irradiancia solar directa exterior ≈ 1,500–2,000 µmol/m²/s.
Var 1 Luz Fotosintética Directa (mínima distancia)
Las placas se ubican a la distancia mínima posible de la fuente PAR. Se espera la mayor tasa de fotosíntesis: la alta densidad de fotones activa al máximo el Fotosistema II, acelerando la fotólisis del agua (2H₂O → 4H⁺ + 4e⁻ + O₂). Las burbujas serán numerosas, visibles a simple vista en 48–72h de crecimiento establecido.
Var 2 Gradiente de Distancia (intensidad intermedia)
Placas situadas a distancia intermedia de la lámpara. Permite observar el punto de compensación lumínica — la irradiancia en la cual la producción neta de O₂ por fotosíntesis iguala al consumo por respiración celular. El gradiente entre VAR 1 y VAR 2 también permitirá construir una curva de respuesta lumínica básica.
Ctrl Control Negativo: Oscuridad Absoluta
Placas envueltas en papel aluminio por todos sus lados. La ausencia de radiación lumínica impide cualquier reacción fotoquímica. El O₂ disuelto en la capa de agua superficial será consumido por la respiración heterótrofa residual del zooplancton aún viable y bacterias en la placa. Resultado esperado: cero generación de burbujas y posible coloración parda por oxidación.
Var 3 Luz Baja — Irradiancia sub-compensatoria (< 20 µmol/m²/s)
Placas ubicadas a la mayor distancia posible de la fuente PAR, o con filtros difusores semitransparentes, para generar una irradiancia inferior al punto de compensación lumínica de la cepa (< 10–20 µmol/m²/s estimado). A esta irradiancia, la fotosíntesis ocurre pero su tasa neta es igual o inferior a la respiración celular: la producción visible de O₂ será mínima o nula, a pesar de que la célula permanece metabólicamente activa. Este tratamiento permite estimar experimentalmente el punto de compensación lumínica de la cepa silvestre aislada, un parámetro ecofisiológico de primer orden.
Un resultado con ausencia de burbujas en VAR 3, pero presencia en VAR 1 y VAR 2, es completamente válido y esperado — no debe interpretarse como falla experimental.
Diseño Factorial: 2 × 4 = 16 Placas
Esta práctica implementa un diseño experimental factorial completo 2 × 4 con dos factores independientes manipulados simultáneamente:
- Factor A — Concentración de medio inorgánico (PISUMMA): 2 niveles → 1.5 mL / 200 mL (dosis estándar) y 3.0 mL / 200 mL (dosis enriquecida)
- Factor B — Intensidad lumínica (PPFD): 4 niveles → Alta, Media, Baja y Oscuridad absoluta
La combinación 2 × 4 genera 8 combinaciones de tratamiento únicas. Con 2 réplicas independientes por combinación, el experimento utiliza un total de 16 placas Petri. Este diseño permite evaluar no solo los efectos principales de cada factor por separado, sino también detectar posibles interacciones entre la disponibilidad de nutrientes y la intensidad lumínica — lo que sería imposible con diseños de un solo factor.
| Placa | PISUMMA / 200 mL | Tratamiento de luz | PPFD registrado (µmol/m²/s) | Réplica |
|---|---|---|---|---|
| P01 | 1.5 mL | Alta — VAR 1 | ___________ | R1 |
| P02 | 1.5 mL | Alta — VAR 1 | ___________ | R2 |
| P03 | 1.5 mL | Media — VAR 2 | ___________ | R1 |
| P04 | 1.5 mL | Media — VAR 2 | ___________ | R2 |
| P05 | 1.5 mL | Baja — VAR 3 | ___________ | R1 |
| P06 | 1.5 mL | Baja — VAR 3 | ___________ | R2 |
| P07 | 1.5 mL | Oscuridad — CTRL | ≈ 0 | R1 |
| P08 | 1.5 mL | Oscuridad — CTRL | ≈ 0 | R2 |
| P09 | 3.0 mL | Alta — VAR 1 | ___________ | R1 |
| P10 | 3.0 mL | Alta — VAR 1 | ___________ | R2 |
| P11 | 3.0 mL | Media — VAR 2 | ___________ | R1 |
| P12 | 3.0 mL | Media — VAR 2 | ___________ | R2 |
| P13 | 3.0 mL | Baja — VAR 3 | ___________ | R1 |
| P14 | 3.0 mL | Baja — VAR 3 | ___________ | R2 |
| P15 | 3.0 mL | Oscuridad — CTRL | ≈ 0 | R1 |
| P16 | 3.0 mL | Oscuridad — CTRL | ≈ 0 | R2 |
Las concentraciones de 1.5 mL y 3.0 mL de PISUMMA por cada 200 mL de medio representan dosis funcionales de nutrientes inorgánicos, en ningún caso inhibitorias para algas de ambiente eutrófico. Las algas filamentosas silvestres están adaptadas evolutivamente a fluctuaciones amplias de N, P y K: en su hábitat natural, las concentraciones de fósforo durante florecimientos algales superan frecuentemente los valores de cualquier medio de laboratorio estándar.
A nivel fisiológico, una mayor disponibilidad de nitrógeno y fósforo en las fases iniciales del cultivo puede estimular la síntesis de proteínas del aparato fotosintético (complejos LHC, subunidades del PSII y PSI, enzimas del ciclo de Calvin), lo que en teoría se traduciría en mayor biomasa y mayor tasa potencial de fotosíntesis. Sin embargo, esta ventaja nutricional solo se materializa en presencia de irradiancia suficiente — no hay fotosíntesis posible sin fotones, independientemente de los nutrientes disponibles. El objetivo del factor A es precisamente cuantificar si los nutrientes son co-limitantes con la luz en esta cepa silvestre.
Fase de Crecimiento, Evaluación y Resultados Esperados
La evaluación del crecimiento algal en esta práctica es esencialmente una medición de la actividad fotosintetizadora: cuántos fotones de PAR fueron transducidos en equivalentes de reducción (NADPH) y cuánto oxígeno se liberó como subproducto de la fotólisis del agua. Las burbujas de O₂ atrapadas en la matriz de agar son la evidencia directa, macroscópica y cuantificable de que el Fotosistema II está operando activamente. Esta sección articula lo que se espera observar, por qué, y qué significaría si el resultado fuera diferente.
Resultados Esperados por Nivel de Irradiancia
Alta luz VAR 1 — Irradiancia máxima (PPFD > 100 µmol/m²/s)
En las placas expuestas a alta irradiancia, el flujo de fotones supera ampliamente el punto de saturación lumínica de las algas filamentosas silvestres. La consecuencia es la activación máxima del Fotosistema II: la clorofila a del centro de reacción P680 absorbe fotones y cede electrones al aceptor primario, desencadenando la fotólisis del agua (2H₂O → 4H⁺ + 4e⁻ + O₂) en el Complejo de Evolución del Oxígeno (OEC). El O₂ producido difunde al agar y forma burbujas visibles en 48–72 h post-inoculación en filamentos con crecimiento establecido.
Se espera observar: mayor densidad de burbujas por cm², filamentos con coloración verde intensa y uniforme (alta concentración de clorofila funcional), y expansión radial visible desde el punto de inoculación central. Este tratamiento es la condición de referencia de máxima actividad metabólica del experimento.
Luz media VAR 2 — Irradiancia intermedia (PPFD estimado: 20–80 µmol/m²/s)
A irradiancias intermedias, la tasa fotosintética opera por encima del punto de compensación pero por debajo de la saturación. El resultado es una actividad fotosintetizadora moderada y sostenida: se observarán burbujas, pero en número significativamente menor que en VAR 1. La pigmentación puede ser ligeramente más pálida, ya que a menor irradiancia el alga no activa al máximo la síntesis de clorofila de antena.
Este tratamiento es el más analíticamente interesante: permite estimar el rango lineal de la curva de respuesta lumínica, donde la tasa de fotosíntesis es directamente proporcional al PPFD. Si el valor medido se aproxima al punto de compensación lumínica, la producción neta de O₂ visible puede ser casi nula — lo cual es un resultado válido y esperado, no un error experimental.
Luz baja VAR 3 — Irradiancia sub-compensatoria (PPFD < 20 µmol/m²/s)
Por debajo del punto de compensación lumínica, la tasa de fotosíntesis neta no supera el consumo de O₂ por respiración celular. La producción visible de O₂ es nula o imperceptible: no se esperan burbujas en el agar, aunque el alga permanece viva y metabólicamente activa, sustentándose sobre reservas energéticas internas (almidón, lípidos de tilacoides).
Si se observan filamentos sin crecimiento externo pero con coloración verde preservada, el resultado es correcto: el alga está en modo de mantenimiento, no en modo de crecimiento. La ausencia de burbujas en VAR 3, comparada con la abundancia en VAR 1, es la demostración experimental más directa de la dependencia cuantitativa entre PPFD y fotosíntesis oxigénica.
Oscuridad CTRL — Oscuridad absoluta (PPFD ≈ 0)
La ausencia total de fotones impide cualquier reacción fotoquímica en los tilacoides: el P680 no puede ser fotoexcitado y la cadena de transferencia de electrones del PSII permanece inactiva. No habrá producción de O₂. El O₂ disuelto en el agar y en la capa de agua superficial será consumido gradualmente por la respiración heterótrofa residual de bacterias y zooplancton aún presentes, y por la respiración mitocondrial del propio alga.
El resultado esperado es ausencia total de burbujeo. En observaciones prolongadas (días 5–7), puede aparecer coloración amarillenta o parda por degradación de clorofila a feofitina, consecuencia de la falta de renovación pigmentaria en oscuridad. Este tratamiento demuestra que el sistema de producción de O₂ observado es estrictamente fotodependiente.
Efecto Comparativo de las Concentraciones de Nutrientes (1.5 mL vs 3.0 mL)
El factor nutricional actúa como un modulador de fondo de la respuesta fotosintetizadora — no como su determinante principal. Al comparar las placas de 1.5 mL y 3.0 mL dentro del mismo nivel de luz, se puede estimar si los nutrientes son co-limitantes con la irradiancia en las condiciones de este experimento.
En las placas de 3.0 mL, la mayor disponibilidad de N, P y micronutrientes puede facilitar una síntesis más rápida de proteínas fotosintéticas (subunidades D1/D2 del PSII, complejos LHC-II, ferredoxina), lo que podría traducirse en mayor densidad de biomasa y coloración más intensa durante los primeros días. Sin embargo, el número de burbujas de O₂ sigue dependiendo fundamentalmente del PPFD disponible: con oscuridad, no se producirán burbujas independientemente de la concentración nutricional.
La comparación más informativa es la intra-nivel: si las placas de 3.0 mL bajo alta irradiancia producen significativamente más burbujas que las de 1.5 mL, se confirma co-limitación nutricional en este sistema. Si la diferencia es pequeña, se confirma que la luz es el factor único limitante bajo las condiciones de cultivo del laboratorio.
Fundamento Bioquímico: Fotosistema II, Fotólisis y Producción de O₂
Cada burbuja de O₂ visible en el agar representa la acumulación de millones de reacciones individuales de fotólisis. El Complejo de Evolución del Oxígeno (OEC), asociado al lado luminal del Fotosistema II, contiene un clúster de cuatro manganesos (Mn₄CaO₅) que oxida sucesivamente dos moléculas de agua a través del ciclo de Kok: 2H₂O → O₂ + 4H⁺ + 4e⁻. Los electrones extraídos reducen el aceptor primario QA y después QB (plastoquinona), pasando luego por el complejo Cyt b₆f hasta el plastocianina. Los protones liberados en el lumen tilacoidal generan el gradiente electroquímico que impulsa la ATP sintasa, produciendo la energía que fija CO₂ en el ciclo de Calvin.
El O₂ producido difunde a través del citoplasma del alga y la pared celular hacia el agar circundante. Al superar la concentración de saturación del gas en el gel (~8–9 mg/L a 20 °C), se forman microburbujas que crecen y se hacen visibles. La interpretación es directa: mayor densidad de burbujas = mayor tasa de fotólisis del agua = mayor actividad del Fotosistema II.
Indicadores de Problemas Experimentales
Los siguientes resultados, si ocurren en todos los tratamientos simultáneamente, señalan un error metodológico que debe ser identificado y corregido:
- Sin burbujas en VAR 1 (alta luz) en todos los grupos: indica inóculo inactivo, filamentos muertos por el proceso de lavado, temperatura excesiva durante la preparación del medio (desnaturalización de la D1), o uso accidental de agua de la llave sin ajuste de pH que precipitó nutrientes.
- Crecimiento nulo en todos los tratamientos a los 7 días: posible fallo en el ajuste de pH (pH < 6 o > 9 inhibe al alga), concentración salina excesiva por preparación incorrecta del medio, o inóculo obtenido de material no viable.
- Contaminación visible (colonias blancas/amarillas, turbidez, olor ácido): esterilización del medio insuficiente o lavado del inóculo deficiente. Anotar, fotografiar e invalidar las placas contaminadas para el análisis estadístico.
- Burbujas en el control de oscuridad (CTRL): el envoltorio de aluminio tiene fugas de luz. Re-envolver completamente y reiniciar el conteo de esas placas desde cero.
Tabla de Registro Diario — Resumen de Réplicas R1
| Placa | Día 1 | Día 2 | Día 3 | Día 5 | Día 7 | Observaciones |
|---|---|---|---|---|---|---|
| P01 (1.5 mL · Alta) | — | — | — | — | — | |
| P03 (1.5 mL · Media) | — | — | — | — | — | |
| P05 (1.5 mL · Baja) | — | — | — | — | — | |
| P07 (1.5 mL · Oscuridad) | — | — | — | — | — | |
| P09 (3.0 mL · Alta) | — | — | — | — | — | |
| P11 (3.0 mL · Media) | — | — | — | — | — | |
| P13 (3.0 mL · Baja) | — | — | — | — | — | |
| P15 (3.0 mL · Oscuridad) | — | — | — | — | — |
Registrar por placa: burbujas visibles / cm² (estimado), cobertura del filamento (%), coloración (verde intensa / pálida / amarilla / parda), presencia de contaminantes (sí/no). Observar a la misma hora cada día.
Análisis Morfológico de los Filamentos
El análisis morfológico complementa la cuantificación de O₂ al revelar el estado fisiológico del alga en cada tratamiento. Los cambios en coloración, turgencia, tasa de crecimiento lineal e integridad de los filamentos son indicadores macroscópicos confiables de la respuesta metabólica a las condiciones experimentales, y pueden correlacionarse con la actividad del Fotosistema II observada mediante el conteo de burbujas.
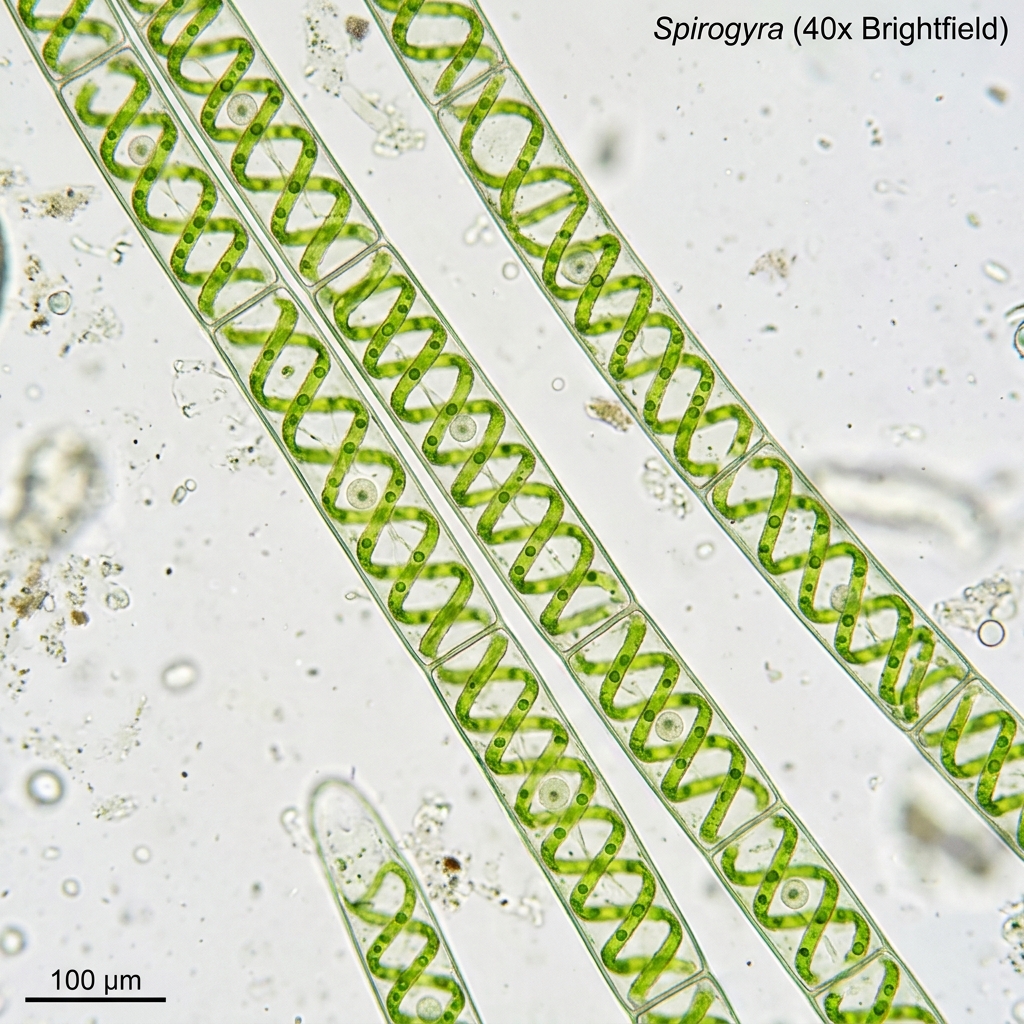
Visualización en microscopio óptico a 400× (10× ocular × 40× objetivo) en estado natural (sin tinción). Se distingue la pared celular celulósica, los septos transversales que dividen el filamento, el cloroplasto helicoidal responsable de la fotosíntesis, la vacuola central y el núcleo suspendido mediante cordones citoplasmáticos (tenantes). Comparar con los filamentos de cada tratamiento experimental para evaluar cambios en la morfología del cloroplasto y la integridad celular bajo distintas irradiancias y concentraciones de nutrientes.
| Característica | Alta luz (óptima) | Luz media | Luz baja | Oscuridad |
|---|---|---|---|---|
| Coloración del filamento | Verde intensa y uniforme | Verde media | Verde pálido / amarillo-verdoso | Amarillo / pardo (feofitina) |
| Turgencia celular | Alta, células bien definidas y turgentes | Normal | Ligeramente reducida | Plasmólisis posible en día 5–7 |
| Crecimiento radial (día 7) | ≥ 15 mm desde el centro | 5–15 mm | < 5 mm | Sin crecimiento visible |
| Integridad de filamentos | Continuos, ramificaciones activas | Continuos | Algunos fragmentados | Fragmentación frecuente a día 5+ |
| Cloroplastos (microscopía 40×) | Grandes, alineados, verde intenso | Normales, bien definidos | Reducidos en tamaño | Desorganización / degradación visible |
Ensayos Funcionales: H₂O₂ y NBT
Los ensayos funcionales bioquímicos permiten evaluar el estado oxidativo intracelular de las algas bajo los distintos tratamientos luminosos y nutricionales. La producción de especies reactivas de oxígeno (ROS: H₂O₂ y O₂•⁻) es un indicador sensible tanto del estrés fotooxidativo — especialmente relevante bajo alta irradiancia — como de la eficiencia del sistema antioxidante del alga. Estos ensayos conectan la observación macroscópica de burbujas con la bioquímica intracelular del metabolismo fotosintético.
Ensayo de Peróxido de Hidrógeno (H₂O₂)
El H₂O₂ se genera como subproducto inevitable del metabolismo aerobio y, en condiciones de fotoinhibición, cuando la intensidad lumínica supera la capacidad de procesamiento del PSII. En ese estado, el exceso de energía de excitación se transfiere al O₂ molecular, reductiéndolo a superóxido (O₂•⁻), que luego es dismutado espontánea o enzimáticamente a H₂O₂. La detección utiliza el reactivo de titanio sulfato o métodos fluorimétricos (Amplex Red), produciendo una coloración cuantificable proporcional a la concentración de H₂O₂. Se espera mayor H₂O₂ en las placas de alta irradiancia si el alga entra en fotoinhibición, y niveles mínimos en oscuridad.
Protocolo simplificado: Homogeneizar ~10 mg (peso fresco) de filamento en 500 µL de tampón fosfato frío (PBS pH 7.4). Centrifugar a 10,000 rpm × 5 min a 4 °C. Tomar 100 µL del sobrenadante y añadir el reactivo de detección según el kit disponible. Medir la absorbancia a 405 nm (titanio sulfato) o 560 nm (Amplex Red) y comparar con curva estándar de H₂O₂.
Ensayo de NBT — Detección de Superóxido (O₂•⁻)
El NBT (azul de nitrotetrazolium) es reducido por el anión superóxido (O₂•⁻) a formazán, un precipitado azul-violeta insoluble. La intensidad del color es proporcional a la concentración de superóxido en la muestra. El O₂•⁻ es generado principalmente en la cadena de transporte de electrones tilacoidal bajo condiciones de sobrecarga lumínica o desequilibrio metabólico, y su acumulación indica que parte de la energía lumínica absorbida no está siendo procesada eficientemente por el aparato fotosintético.
Aplicación en esta práctica: Sumergir fragmentos de filamento (~10 mg) en solución de NBT (0.1% p/v en PBS pH 7.4) durante 30 min en oscuridad a temperatura ambiente. Retirar el exceso de NBT con tres lavados en etanol 70%. Observar la intensidad de la coloración azul-violeta por tratamiento. Una coloración NBT intensa en las placas de alta irradiancia indica producción significativa de superóxido, lo que sugiere que parte del flujo fotónico está generando estrés fotooxidativo en lugar de ser canalizado eficientemente por el PSII. Comparar cualitativamente entre los ocho grupos de tratamiento.
Lógica Didáctica del Diseño Experimental
El diseño de esta práctica integra de forma progresiva los conceptos del metabolismo fotoautótrofo, desde la bioquímica molecular del Fotosistema II hasta la respuesta cuantificable macroscópica en la placa de cultivo. Cada decisión metodológica tiene un fundamento conceptual explícito: el estudiante debe comprender por qué se hace cada paso, no solo cómo ejecutarlo.
| Etapa del protocolo | Acción experimental | Concepto bioquímico / fisiológico que ilustra |
|---|---|---|
| Formulación del medio | Medio inorgánico sin carbono orgánico asimilable | Selección metabólica autótrofos vs. heterótrofos; autotrofía obligada |
| Ajuste de pH al valor de campo | Igualación al pH del hábitat de origen (7.6–8.2) | Adaptación fisiológica, homeostasis iónica y disponibilidad de CO₂/HCO₃⁻ |
| Lavado mecánico del inóculo | Eliminación de zooplancton por dilución y arrastre | Control experimental; reducción de variables confundentes heterótrofas |
| Medición de PPFD por tratamiento | Registro cuantitativo con app Photone u equivalente | Curva de respuesta lumínica; punto de compensación; fotosaturación |
| Diseño factorial 2 × 4 | Combinación de 2 dosis de nutrientes × 4 niveles de luz | Co-limitación de factores; interacciones entre recursos en la fotosíntesis |
| Registro de burbujas de O₂ | Conteo macroscópico diario en agar | Fotólisis del agua; actividad del OEC del PSII; producción neta de O₂ |
| Análisis morfológico | Microscopia óptica y registro de pigmentación | Plasticidad fenotípica; aclimatación lumínica; degradación de clorofila |
| Ensayos NBT y H₂O₂ | Colorimetría de ROS en extractos de filamento | Estrés fotooxidativo; eficiencia del sistema antioxidante (SOD, catalasa) |
La lógica pedagógica de esta práctica sigue una progresión deliberada: Diseño experimental → Inoculación y cultivo → Evaluación cuantitativa de crecimiento y O₂ → Análisis morfológico → Ensayos bioquímicos de ROS. En cada etapa, el estudiante transita de lo macroscópico (burbujas, color, expansión del filamento) a lo molecular (actividad del PSII, producción de superóxido, degradación de pigmentos), conectando la observación a simple vista con las reacciones que ocurren en los complejos proteicos de la membrana tilacoidal a escala nanométrica.
Esta escalera de abstracción creciente — de la placa al fotosistema, del fotosistema a los electrones, de los electrones al oxígeno — es el núcleo pedagógico de la práctica: demostrar que la burbuja que se ve en el agar es la consecuencia directa y cuantificable de la fotoquímica del Fotosistema II, mediada por la irradiancia real que se midió con el teléfono antes de inocular.
Protocolo Paso a Paso
-
1Medición de pH de referencia CRÍTICOCon el potenciómetro calibrado, medir el pH del agua donde se recolectó la muestra. Este valor es el "target" del medio. Las algas del Parque Central están adaptadas a ese rango específico (estimado: 7.6–8.2). Anotar el valor exacto.
-
2Preparación de la solución baseMedir 200 mL de agua destilada en el matraz de 250 mL. Agregar 1.5 mL del fertilizante PISUMMA con pipeta o jeringa graduada. Agitar por homogeneización completa (~30 s).
-
3Ajuste de pH CRÍTICOEl PISUMMA es ácido. Verificar pH con potenciómetro y añadir solución de NaOH o KOH muy diluida gota a gota hasta alcanzar el valor de referencia de campo. No exceder pH 8.5. Ajustar antes de añadir el agar.
-
4Adición y disolución del agarPesar 2.5 g de Agar Aldrich Fine Powder y agregar a la solución. Agitar enérgicamente para dispersar el polvo y evitar grumos. Calentar en microondas en ciclos de 30–40 segundos, agitando entre cada pulso, hasta que la solución pase de opaca a ámbar traslúcido y cristalino. No hervir continuamente — protege la Tiamina.
-
5Vaciado en placas PetriDejar enfriar el matraz hasta ≈ 55°C (tolerable al tacto con cuidado). Verter 20 mL por placa Petri de 60×15 mm, trabajando cerca del mechero o en área estéril. Esta cantidad genera ≈ 7 mm de espesor de agar, retardando la deshidratación. Dejar solidificar a temperatura ambiente sin mover.
-
6Lavado del inóculo (control de zooplancton)Tomar un cúmulo de filamentos con asa o pinza estéril. Pasar el filamento por una caja Petri pequeña con agua destilada estéril y agitar suavemente 2–3 veces. Esto desprende físicamente copépodos, rotíferos y ostrácodos adheridos. Repetir en una segunda gota limpia antes de inocular.
-
7Inoculación puntual centralDepositar el filamento lavado en el centro exacto de la placa. Las algas filamentosas crecerán radialmente desde el punto de inoculación. Los heterótrofos residuales quedarán atrapados en el punto de origen y morirán por inanición en las primeras 24–48 h en el medio inorgánico.
-
8Asignación de tratamientos e incubaciónDistribuir las 10 placas en los tres grupos: VAR 1 (luz directa), VAR 2 (distancia media), CTRL negativo (aluminio). Cubrir bordes con Parafilm o cinta micropore para retener humedad. Agregar opcionalmente una capa milimétrica de agua estéril sobre el agar para mantener el ambiente húmedo que requieren los filamentos.
-
9Registro y observaciónObservar y fotografiar las placas diariamente a la misma hora. Registrar: número de burbujas visibles por cm², cobertura del filamento (%), coloración del agar, presencia de contaminantes. Los primeros resultados comparativos son esperables entre el día 3 y el día 7 post-inoculación.
Especificaciones del Material
| Material | Especificación | Cantidad | Función |
|---|---|---|---|
| Placas Petri | Plástico desechable, 60 × 15 mm | 10 unidades | Cultivo individual por tratamiento |
| Matraz Erlenmeyer | Vidrio borosilicato, 250 mL | 1 | Preparación y calentamiento del medio |
| Agar Aldrich FP | Fine Powder, grado analítico, Sigma-Aldrich | 2.5 g | Agente solidificante de alta pureza |
| Fertilizante PISUMMA | Líquido inorgánico, formulación orquídeas | 1.5 mL | Fuente de macro/micronutrientes |
| Potenciómetro | Calibrado antes de uso | 1 | Control de pH (paso crítico) |
| Lámparas PAR | Luz blanca fría, espectro fotosintéticamente activo | 1–2 | Fuente de irradiancia para VAR 1 y VAR 2 |
| Papel aluminio | Estándar doméstico | c/n | Bloqueo total de luz (CTRL negativo) |
| Parafilm / Micropore | Cinta de sellado para laboratorio | c/n | Prevención de deshidratación |